
National Library of Medicine
Kristyn R. Vitale
Resumo
Resumo simples
Os gatos estão presentes em toda parte nos espaços ocupados por humanos. Eles vivem em nossas casas e nas ruas, ocupando diversos ambientes sociais. No entanto, os cientistas ainda divergem quanto à natureza social dos gatos de vida livre (free-ranging cats – FRCs). Este artigo tem como objetivo revisar a literatura relevante sobre o comportamento social desses animais, abordando os comportamentos observados e as principais conclusões de cada estudo. Os resultados desta revisão indicam que as interações entre gatos de vida livre não são aleatórias, apresentam complexidade social e merecem estudos adicionais. O conjunto de literatura existente fornece uma excelente base para trabalhos futuros. Novas pesquisas nessa área podem ajudar a esclarecer ainda mais a vida social desses gatos.
Resumo
Apesar da diversidade de situações sociais em que os gatos vivem, o grau de sociabilidade dos gatos de vida livre (FRCs) ainda é objeto de debate. O objetivo desta revisão é explorar a literatura sobre o comportamento social desses animais. Uma busca em duas grandes bases de dados revelou a existência de estudos sobre interações sociais intraespecíficas e interespecíficas. A dinâmica social intraespecífica dos FRCs varia conforme o grupo analisado: alguns grupos apresentam fortes laços sociais e afiliações preferenciais, enquanto outros mantêm associações mais frouxas, com pouca ou nenhuma interação social. Fatores que influenciam as interações entre indivíduos da mesma espécie incluem porte físico, hierarquia social, individualidade, idade, grau de parentesco ou familiaridade, sexo, nível de cuidado humano, disponibilidade de alimento, estado de saúde e condição reprodutiva dos outros gatos. Também ocorrem interações interespecíficas com humanos e animais silvestres. Verificou-se que o sexo do humano e as condições climáticas no momento da interação influenciam o comportamento social dos FRCs. As interações com animais silvestres mostraram-se fortemente associadas aos horários de alimentação dos gatos. Essas descobertas corroboram a ideia de que os FRCs são “generalistas sociais”, demonstrando flexibilidade em seu comportamento social. A vida social dos FRCs é uma realidade complexa que merece estudos mais aprofundados.
Palavras-chave: Felis silvestris catus, gato, gato de vida livre, comportamento social, colônia de gatos, generalista social
1.Introdução
Os gatos domésticos estão presentes em toda parte no ambiente humano. Eles são encontrados tanto como animais de companhia em residências quanto como gatos de vida livre (FRCs) em ruas de cidades, estacionamentos, fazendas e outros locais ao ar livre onde recursos como alimento, abrigo e parceiros são abundantes [1]. O sistema social dos FRCs tem sido descrito como “socialidade facultativa”, e os gatos domésticos demonstram grande flexibilidade em seu comportamento social [1,2,3]. Os FRCs são encontrados vivendo tanto de forma solitária quanto em grupos. Os grupos de gatos ocorrem em densidades baixas e altas, variando de menos de 1 gato por km² a mais de 2.500 gatos por km² [4]. Apesar da diversidade de situações sociais em que os FRCs vivem, o grau de sociabilidade desses animais ainda é objeto de debate [5].
FRCs incluem qualquer gato doméstico (Felis silvestris catus) que não tenha restrições de movimentação. Os FRCs podem ser compostos por gatos com variados níveis de experiência com humanos e de dependência em relação a eles. Termos-chave relacionados aos FRCs estão definidos na Tabela 1. FRCs individuais diferem quanto à sua experiência de socialização (por exemplo, duração da socialização, número de parceiros sociais e em que momento do desenvolvimento do indivíduo a socialização ocorreu) e ao grau de domesticação (por exemplo, número de gerações ou intensidade da seleção) [6]. Conforme afirmam Udell e Brubaker: “A interação entre domesticação e socialização é o melhor prognóstico do fenótipo social que um indivíduo apresentará na fase adulta” ([6], p. 329).
Tabela 1.
Definições de termos-chave relacionados a gatos de vida livre (FRCs).
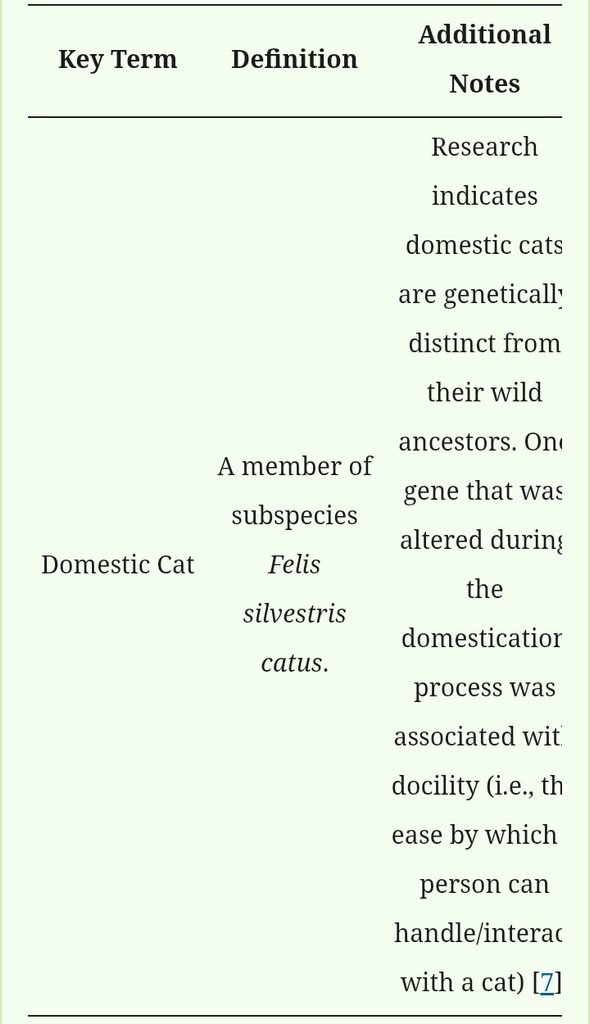
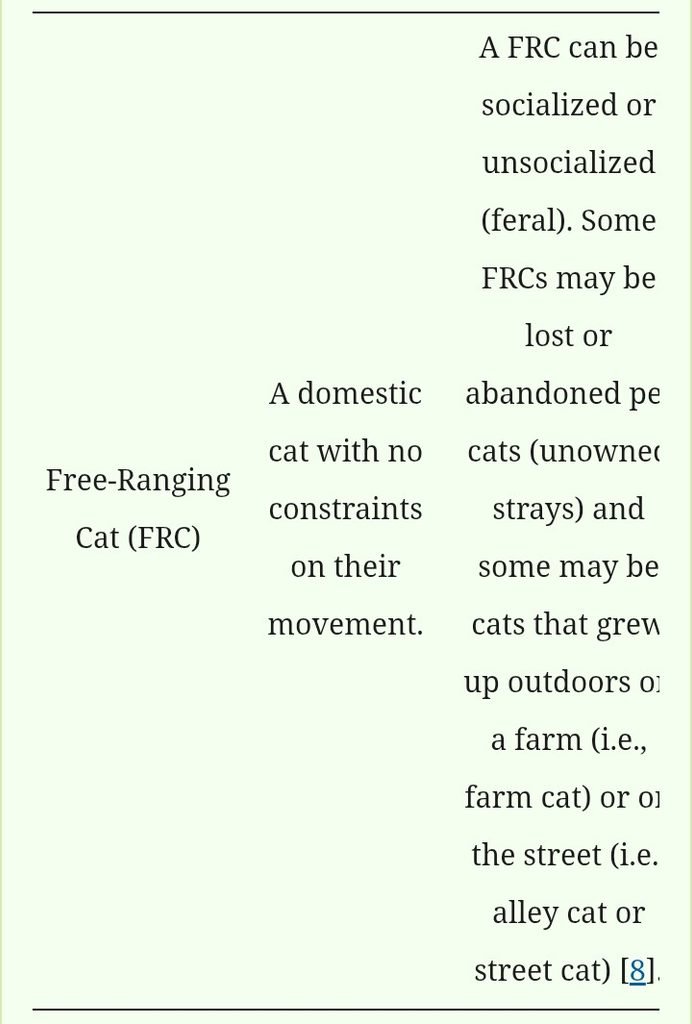
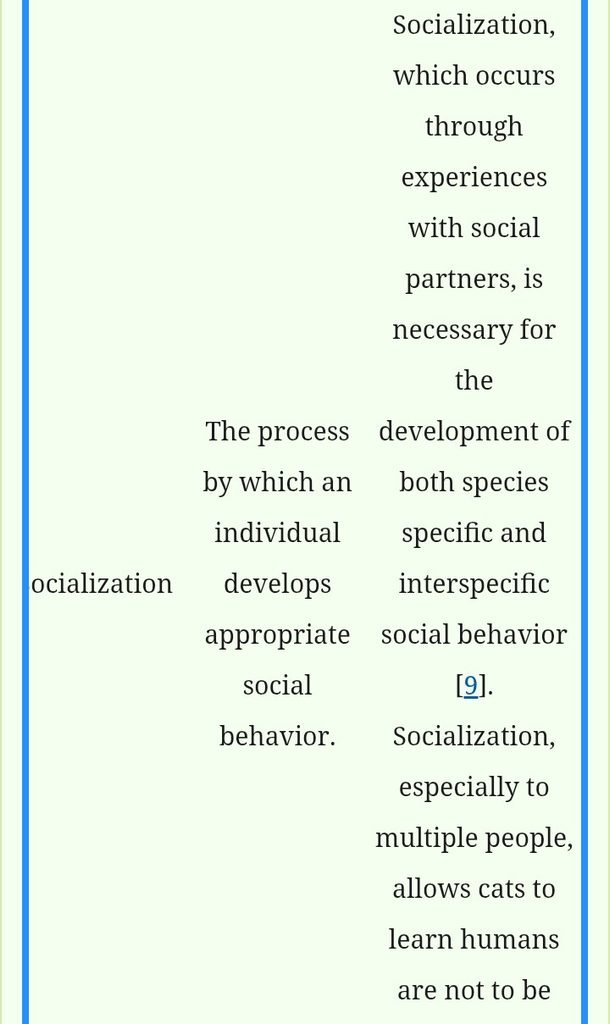
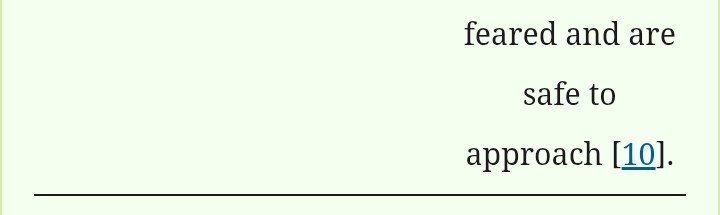
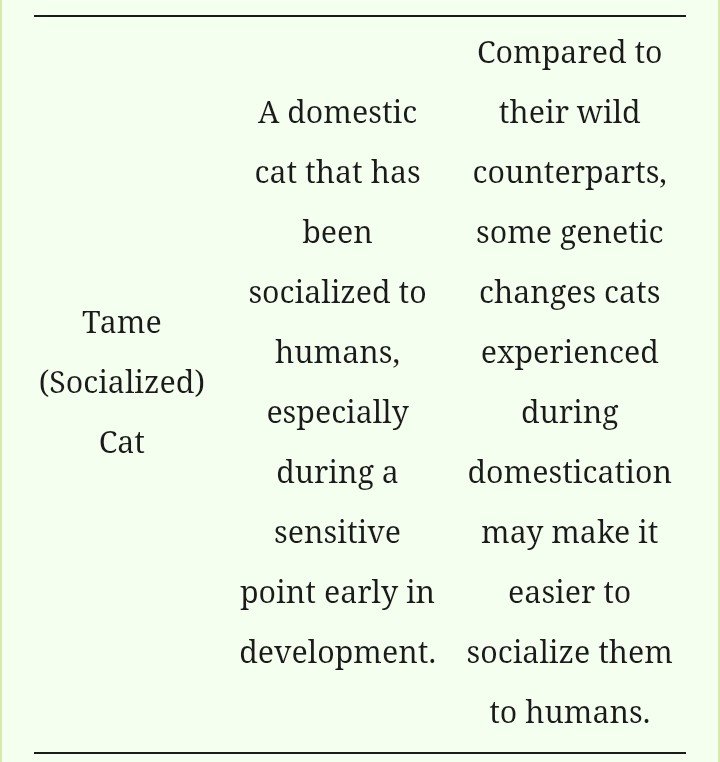
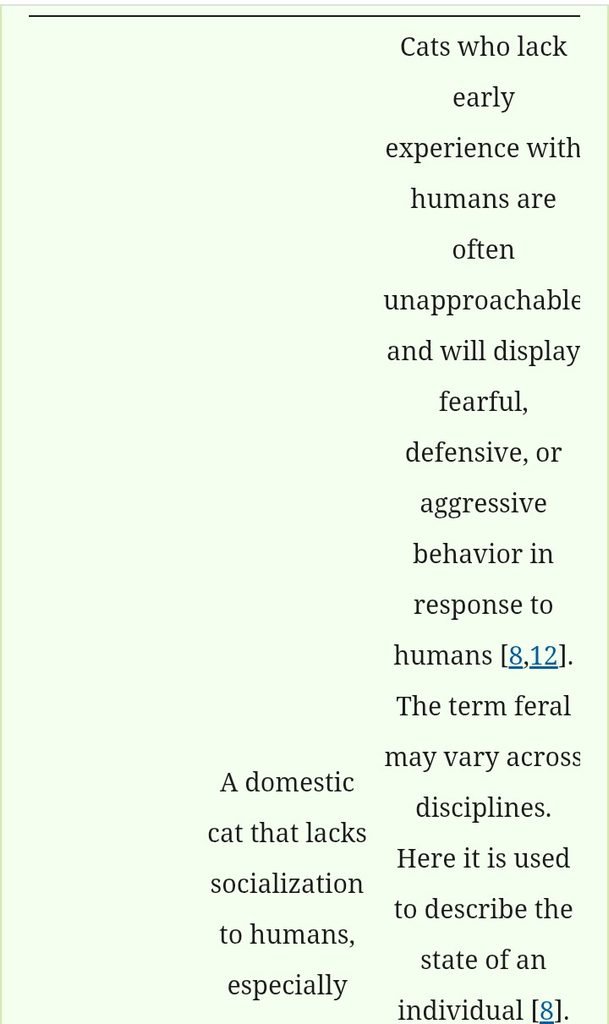
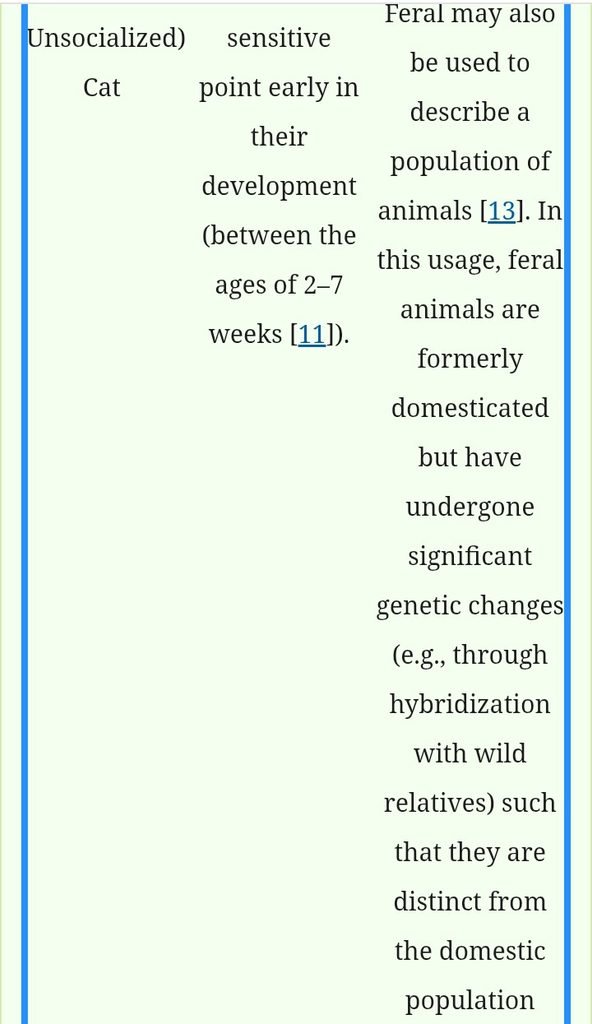
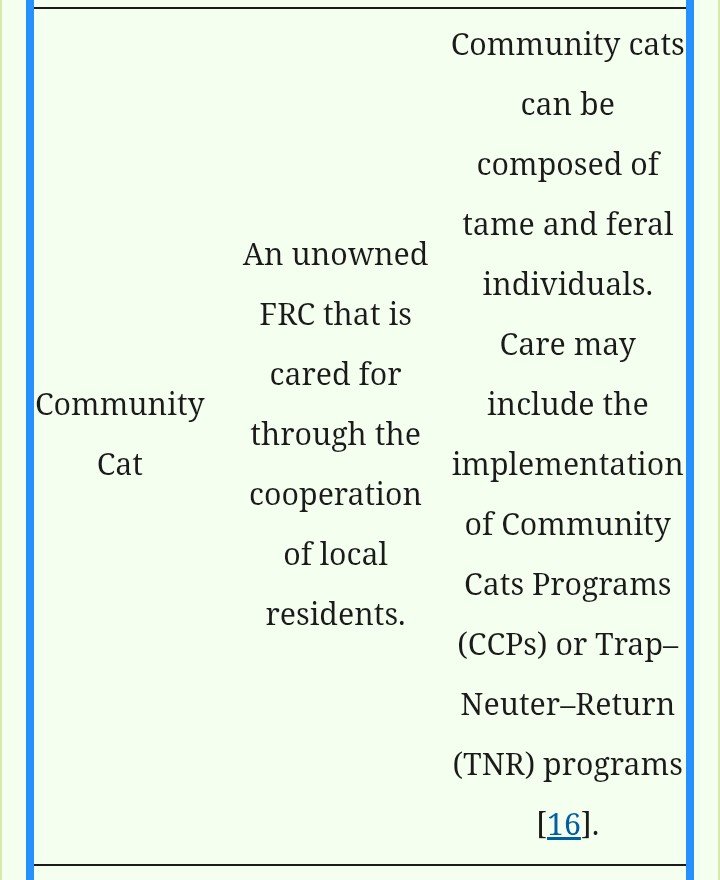
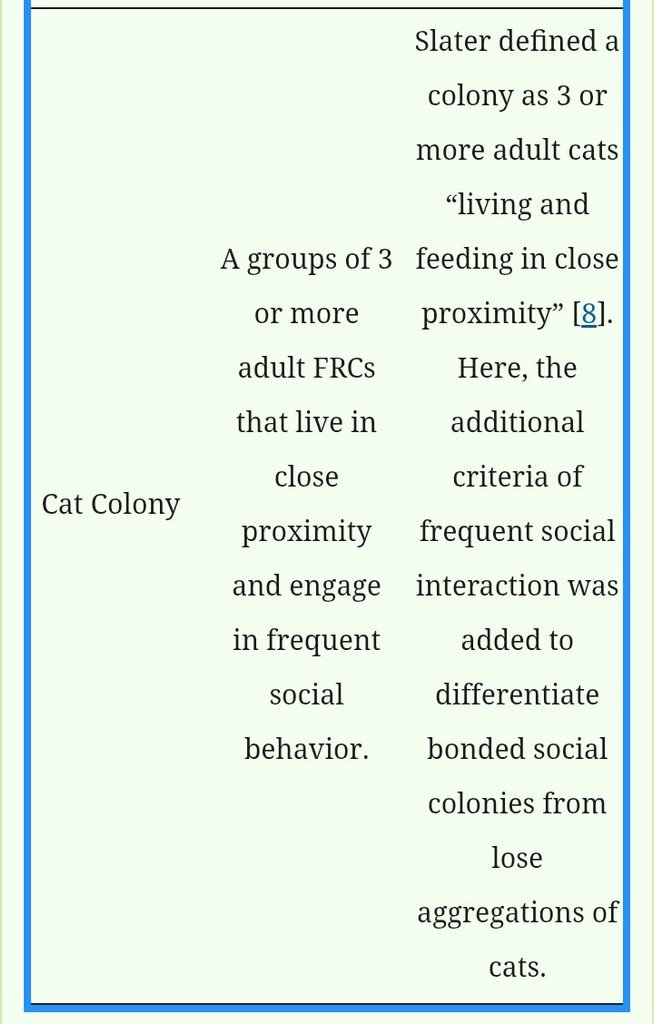
O comportamento social pode ser definido como qualquer interação entre dois ou mais indivíduos da mesma espécie ou de espécies diferentes [17]. Essas interações não são predatórias e podem ser classificadas em diversas categorias comportamentais. Entre elas estão os comportamentos afiliativos, que são comportamentos sociais amistosos cuja função é formar, manter ou fortalecer um vínculo social. O comportamento agonístico é qualquer comportamento social relacionado à agressão, à submissão ou a ameaças [18]. Os comportamentos reprodutivos abrangem quaisquer interações relacionadas ao acasalamento, como a corte, a monta e a cópula. Os comportamentos de cuidado incluem interações sociais fundamentais para a sobrevivência, ocorrendo entre uma gata e seus filhotes [19,20].
Embora possa parecer simples classificar comportamentos em categorias específicas, alguns deles podem se enquadrar em múltiplas categorias [21]. Por exemplo, o ato de rolar (virar-se de costas, expondo a barriga a um parceiro social) pode ser considerado tanto afiliativo quanto de submissão (ver Figura 1a). Nesses casos, a categoria do comportamento em foco dependerá do contexto em que ele ocorre. Por exemplo, se o allogrooming (cuidado mútuo ou limpeza social) ocorre entre uma gata e seu filhote, é considerado comportamento de cuidado parental; contudo, se ocorre entre indivíduos adultos da mesma espécie, é considerado afiliativo. Além disso, alguns comportamentos podem, inicialmente, parecer pertencer a múltiplas categorias. Isso pode ser observado em vários comportamentos associados à brincadeira. Comportamentos de brincadeira podem se assemelhar à agressão (p. ex., morder ou dar patadas), mas distinguem-se dela por não serem executados com intensidade máxima e por serem frequentemente precedidos ou seguidos por comportamentos afiliativos (Figura 1b; assunto abordado mais adiante). Em suma, as categorias comportamentais nem sempre são claramente delimitadas, mas podem ser esclarecidas mediante a análise do contexto em que ocorreram.
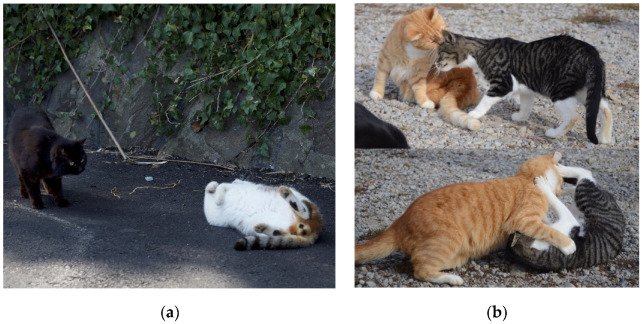
Fotos de interações sociais entre gatos de vida livre (FRC) feitas por K. Vitale: (a) um gato exibe um movimento de rolar no chão para outro; (b, acima) um gato macho tigrado esfrega a cabeça em um macho alaranjado como saudação; (b, abaixo) a interação evolui para uma brincadeira, observando-se uma brincadeira social com contato físico pleno entre a dupla.
Em muitas espécies animais, relações sociais estabelecem-se entre indivíduos com um histórico de interações. Em alguns casos, pode formar-se um vínculo de afiliação, definido como “relações de longo prazo estabelecidas entre indivíduos e caracterizadas por altas taxas de interações amigáveis e pacíficas” ([17], p. 1). A ideia de que gatos de vida livre (FRCs) formam relações sociais tem sido objeto de debate, e Spotte afirmou que esses gatos “devem ser considerados solitários — não sociais” ([5], p. 49). Portanto, o objetivo desta revisão é explorar a literatura sobre o comportamento social de gatos de vida livre. Este artigo discutirá quais comportamentos sociais foram estudados nesses animais e as principais conclusões de cada estudo, a fim de chegar a conclusões sobre a natureza social dos gatos de vida livre.
2. Materiais e Métodos
2.1. Escopo da literatura
Para serem consideradas na revisão, as publicações precisavam abordar algum aspecto do comportamento social ou da cognição social de gatos de vida livre (FRCs) (Tabela 1). Não foram incluídas pesquisas envolvendo gatos domésticos com restrições de movimentação (por exemplo, gatos com acesso tanto a ambientes internos quanto externos), gatos de abrigos ou gatos mantidos em recintos ao ar livre. Para inclusão, o trabalho deveria consistir em uma pesquisa original que examinasse diretamente o comportamento social ou algum aspecto da cognição social dos FRCs (isto é, como eles percebem, processam e respondem a um parceiro social [22,23]). A pesquisa precisava medir ou observar pelo menos um comportamento social específico ou uma interação entre uma díade ou um grupo de indivíduos. Isso abrange tanto interações sociais com coespecíficos quanto interações não predatórias com outras espécies. Pesquisas sobre a percepção ou as crenças humanas a respeito dos FRCs não foram consideradas. Trabalhos sobre estratégias de manejo (como CED ou erradicação), fatores de saúde (doenças, vírus ou transmissão de parasitas), comportamento de uso da área de vida, nível de atividade, abundância ou densidade populacional, bem como estudos sobre comportamento predatório, não foram incluídos na revisão, a menos que medissem ou observassem pelo menos um comportamento social. Apenas artigos de pesquisa científica ou capítulos de livros publicados foram considerados. Esses trabalhos poderiam ser estudos experimentais, estudos observacionais ou relatos de caso. Artigos ou capítulos de revisão, comentários e teses ou dissertações não publicados foram excluídos. Apenas estudos publicados em inglês foram incluídos.
2.2. Busca e filtragem de literatura
As bases de dados online Web of Science e Scopus foram utilizadas para realizar a busca na literatura. A data da última busca, tanto na Web of Science quanto na Scopus, foi 23 de setembro de 2021. As seguintes expressões booleanas foram utilizadas na busca: (cat OR feli*) AND (roam* OR range* OR feral OR community OR stray OR alley OR colon*) AND (behave* OR social* OR interact* OR cog*). Consulte a Tabela 1 para as definições dos termos-chave relacionados a FRCs.
Isso resultou em um total de 15.087 resultados da Web of Science e 445.708 da Scopus. A literatura foi filtrada para incluir apenas artigos (excluindo artigos de revisão) e apenas resultados publicados em inglês. Isso resultou em um total de 13.553 resultados da Web of Science e 297.620 da Scopus. Os resultados foram então classificados por relevância, e os primeiros 400 resultados de ambas as bases de dados (Web of Science e Scopus) foram selecionados. Um total de 133 resultados duplicados entre as duas bases de dados foi removido. Os títulos de 667 artigos relevantes foram lidos para determinar se o trabalho se enquadrava no escopo da pesquisa; essa etapa excluiu outros 248 trabalhos. Os resumos dos 419 trabalhos restantes foram lidos para verificar se se enquadravam no escopo da pesquisa; isso excluiu outros 341 trabalhos, restando 78. Após o exame dos textos completos, mais 49 trabalhos foram removidos (por exemplo, por não focarem em FRCs, não medirem diretamente o comportamento social, envolverem gatos restritos/confinados ou tratarem-se de artigos de revisão em vez de pesquisas originais). Restaram, assim, 29 trabalhos, todos incluídos na análise final. Outros 2 trabalhos foram identificados após a análise das referências durante a leitura da literatura relevante.
3.Resutados
A busca na literatura resultou em um total de 31 trabalhos relevantes que foram incluídos na revisão. Os trabalhos foram classificados em categorias semelhantes. Os resultados indicam a existência de duas áreas principais de pesquisa: interações entre FRCs (interações intraespecíficas; 28 trabalhos) e interações entre FRCs e outras espécies, como humanos e animais silvestres (interações interespecíficas; 3 trabalhos). Os trabalhos de cada área foram organizados por categoria comportamental. Nos casos em que um comportamento se enquadrava em múltiplas categorias, ele foi alocado na categoria mais relevante, com base no foco do trabalho e no contexto do comportamento, conforme discutido anteriormente. Os 31 trabalhos são apresentados nas Tabelas Suplementares S1 e S2, contendo informações sobre o local do estudo, o(s) comportamento(s) mensurado(s) ou observado(s) e a referência bibliográfica. Fotografias de comportamentos sociais abordados na literatura podem ser vistas nas Figuras 2 e 3.
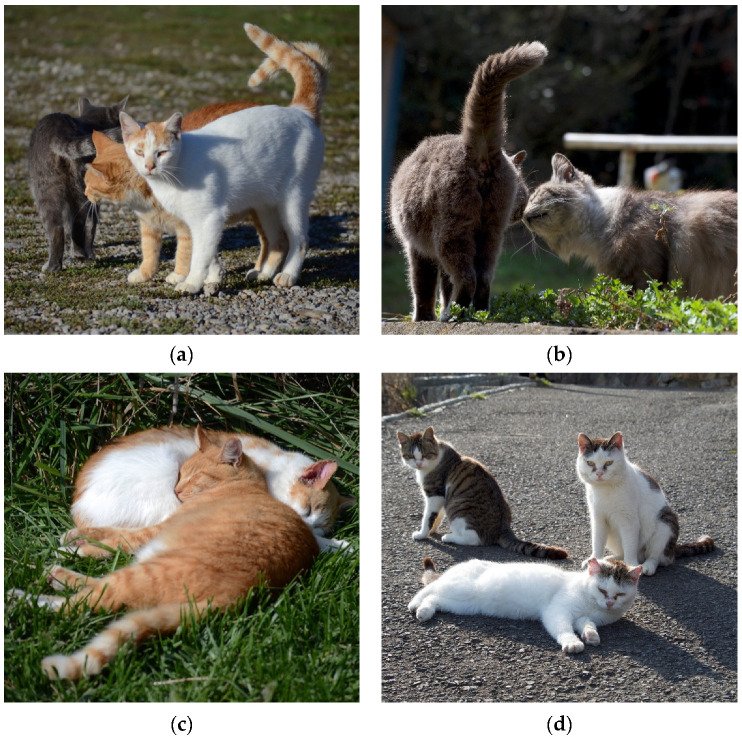
Fotos de comportamentos sociais comuns de gatos de vida livre (FRC) feitas por K. Vitale: (a) um gato macho alaranjado realiza um comportamento de roçar-se (allorubbing) com outro macho adulto; ambos exibem o sinal de cauda erguida; (b) dois gatos realizam uma interação de cheirar o focinho; um deles exibe a cauda erguida; (c) dois machos de vida livre dormem juntos, em contato corporal; (d) um grupo de gatos sentados próximos uns dos outros em Tashirojima, no Japão.
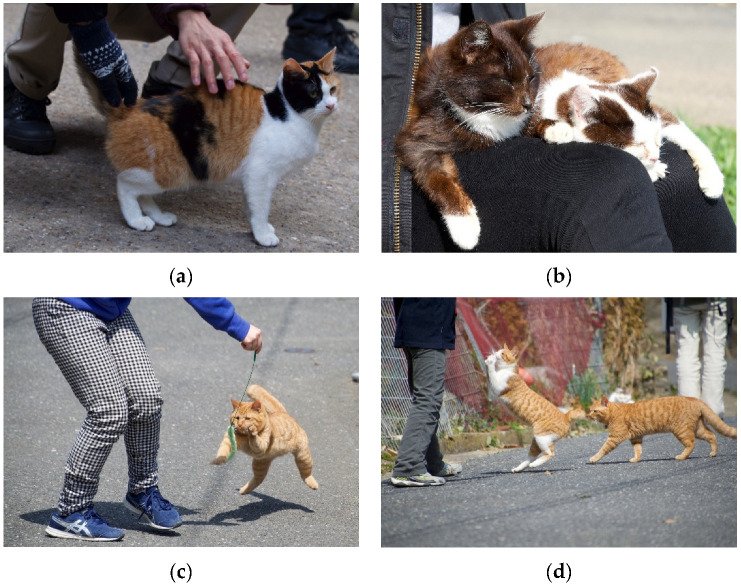
Fotos de interações sociais entre gatos de áreas de livre circulação (FRCs) e humanos, feitas por K. Vitale: (a) interação entre gato e humano em Fushimi Inari, um santuário em Quioto, Japão. Um gato de área de livre circulação aceita carinho de várias pessoas ao mesmo tempo; (b) gatos de áreas de livre circulação em Tashirojima, uma ilha no Japão, sentam-se no colo de um humano desconhecido; (c) um visitante de Tashirojima brinca com um gato residente usando um brinquedo; (d) outro visitante de Tashirojima usa um brinquedo para brincar com um gato. Outros gatos começam a se reunir para revezar a brincadeira com o brinquedo.
4.Discussão
4.1. Interações intraespecíficas
A maior parte dos trabalhos identificados na busca concentrou-se em interações entre gatos. Nesses estudos, um ou mais comportamentos sociais foram medidos ou observados entre indivíduos da mesma espécie. Esses trabalhos são analisados a seguir.
4.1.1. Locais do estudo
A literatura tem se concentrado em gatos de vida livre (FRCs) que habitam diversos locais, incluindo portos de pesca, estaleiros e ilhas. Nesses ambientes, esses grupos de gatos podem apresentar um comportamento altamente gregário. Por exemplo, no Estaleiro Naval de Portsmouth, na Inglaterra, viviam cerca de 200 gatos de vida livre [24], com uma densidade populacional de 300 gatos por km² [4]. Locais como estaleiros ou portos de pesca em ilhas frequentemente sustentam grandes populações de gatos devido à disponibilidade de alimento suplementar. Esse alimento pode ser fornecido diretamente por pessoas ou obtido pelos gatos a partir de restos descartados de embarcações ou do lixo acumulado nas áreas portuárias [25,26]. A presença de gatos de vida livre é particularmente notável em algumas ilhas, o que gera grande controvérsia. A predação exercida por esses animais pode impactar negativamente ecossistemas sensíveis e espécies endêmicas insulares. Nessas situações, é comum a implementação de programas de erradicação ou controle populacional via iscas. Por outro lado, em alguns casos, as populações de gatos de vida livre nessas ilhas são muito apreciadas, chegando a transformar esses locais em destinos turísticos populares, como ocorre no Japão (ex.: Tashirojima, uma ilha japonesa que abriga gatos de vida livre, conforme ilustrado nas Figuras 1a, 2b,d e 3). Outro exemplo de “ilha dos gatos” é Ainoshima, uma ilha de 125 hectares situada a aproximadamente 7 km da costa de Shingu, na província de Fukuoka, Japão. Ainoshima tem sido palco de diversos estudos sobre o comportamento social de gatos de vida livre [27,28,29,30,31].
Grupos de gatos de vida livre (FRCs) também são comuns em centros urbanos e áreas residenciais. Pesquisas têm abrangido FRCs que habitam locais como o Regent’s Park em Londres, Inglaterra [32], áreas urbanas e residenciais de Israel [33,34,35,36] e centros urbanos de Roma, Itália. Esses locais incluem o trabalho de Natoli e colaboradores na praça do mercado “Piazza Vittorio Emanuele” [37], em um grande pátio conhecido como “Garbatella” [38,39,40] (que apresentava uma densidade de 2.833 gatos por km² [41]) e nas ruínas históricas próximas ao centro de Roma, o “Fori di Traiano” [42].
Ambientes rurais também são locais comuns para a presença de gatos de vida livre (free-roaming cats – FRCs). Um dos primeiros estudos a examinar o comportamento social de FRCs foi realizado por Laundré com gatos que viviam em uma fazenda de laticínios em Green Bay, Wisconsin, EUA [43]. Um dos estudos mais conhecidos sobre o comportamento social de colônias de gatos foi conduzido por Macdonald, Apps, Carr e Kerby na Church Farm, em Bradford, Devon, Reino Unido [44]. A colônia que vivia na Church Farm era composta por um grupo central de 4 a 5 gatos, com gatos de outros grupos também aparecendo no local de observação. Por fim, duas populações rurais — Aimargues e Saint Just-Chaleyssin, próximas a Lyon, na França — serviram de cenário para diversos estudos sobre a dinâmica populacional e a epidemiologia de FRCs [45].
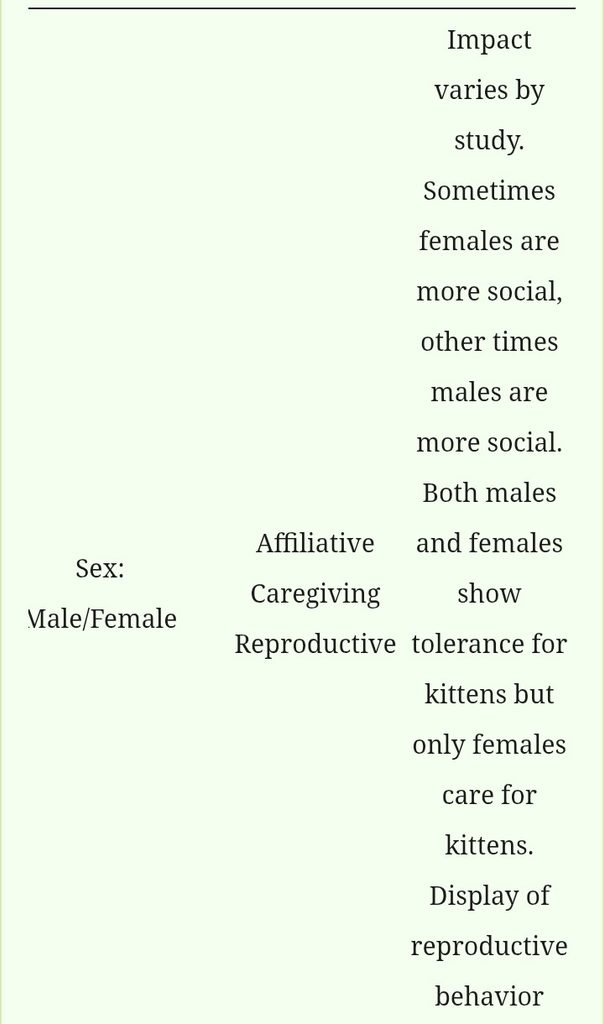
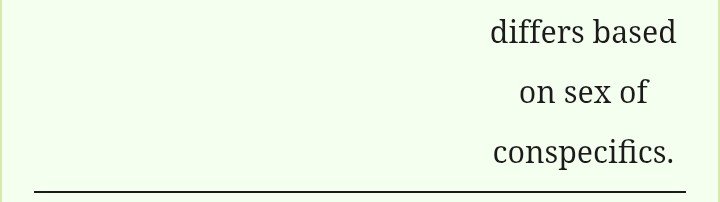
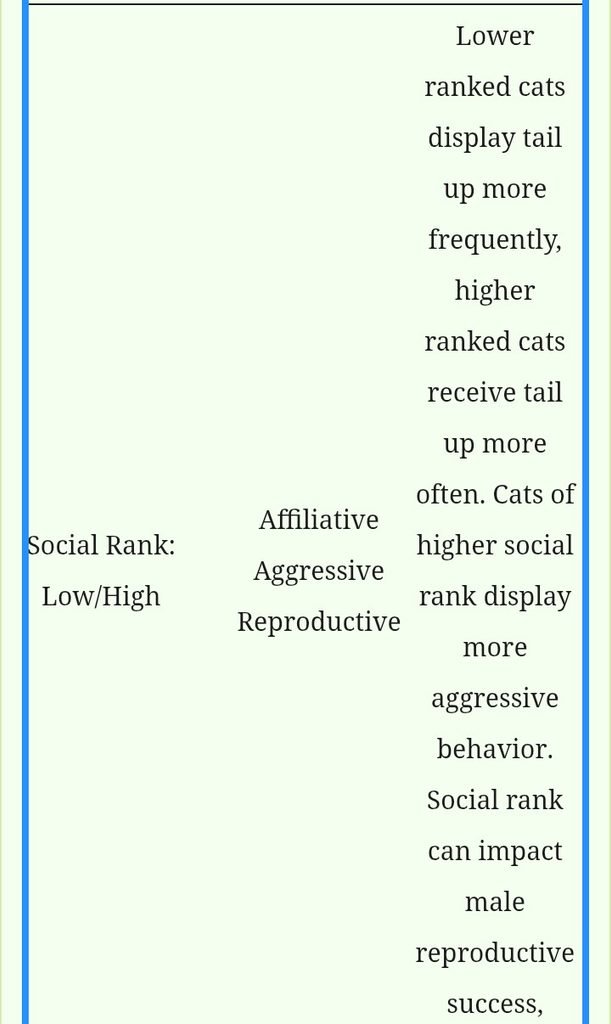
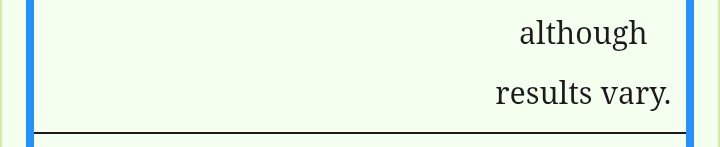
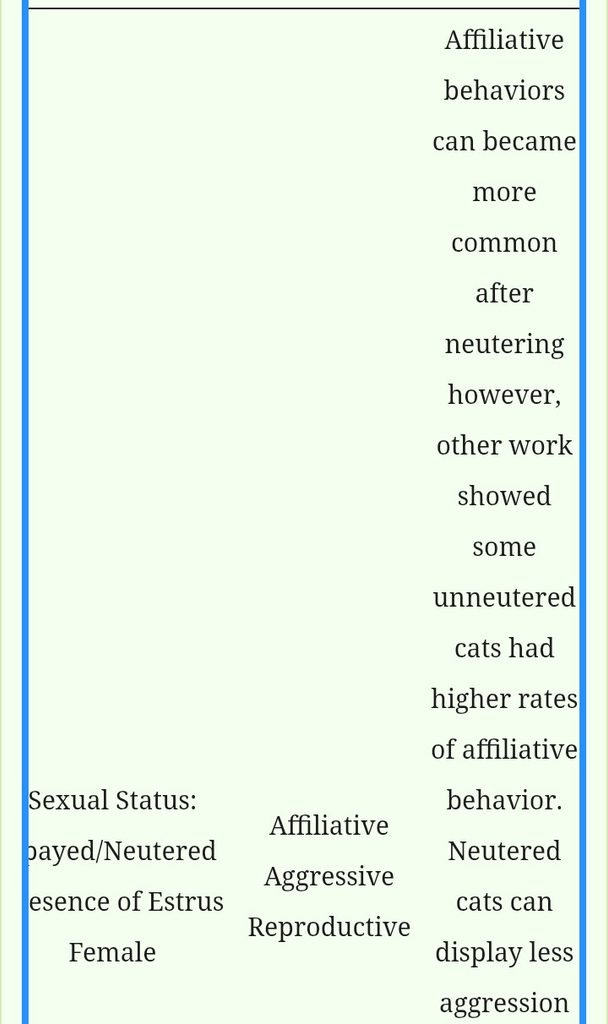
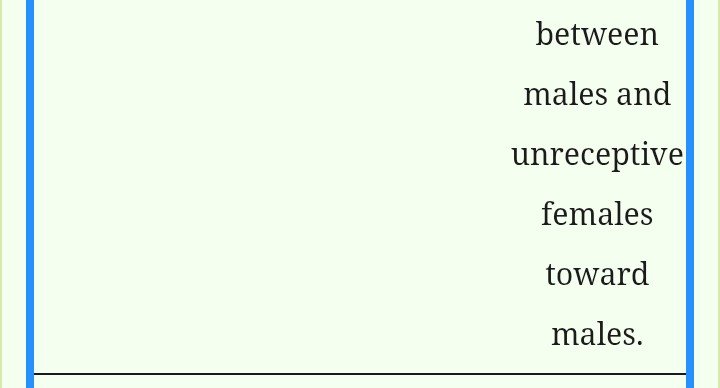
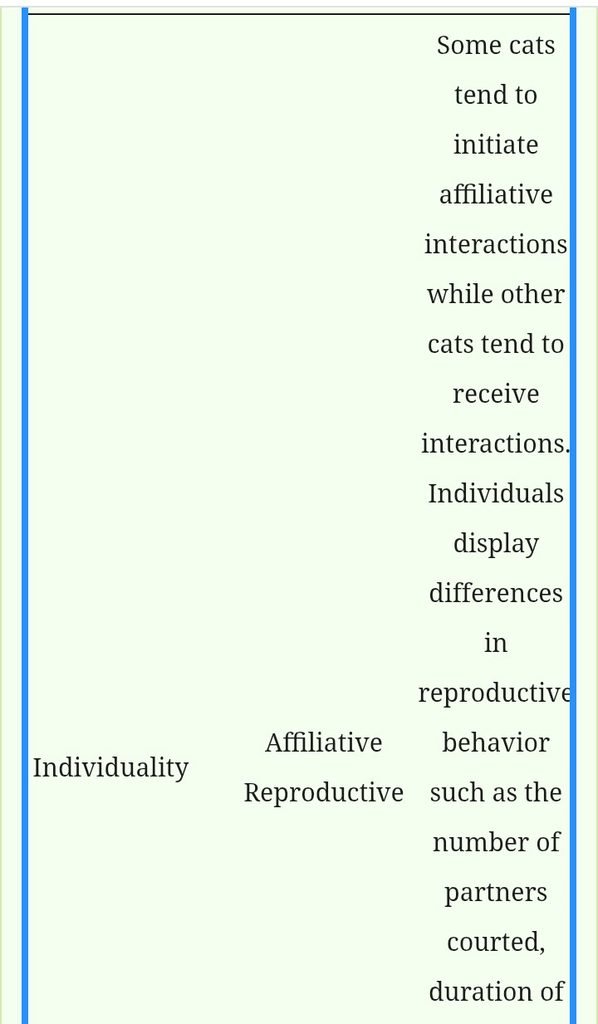
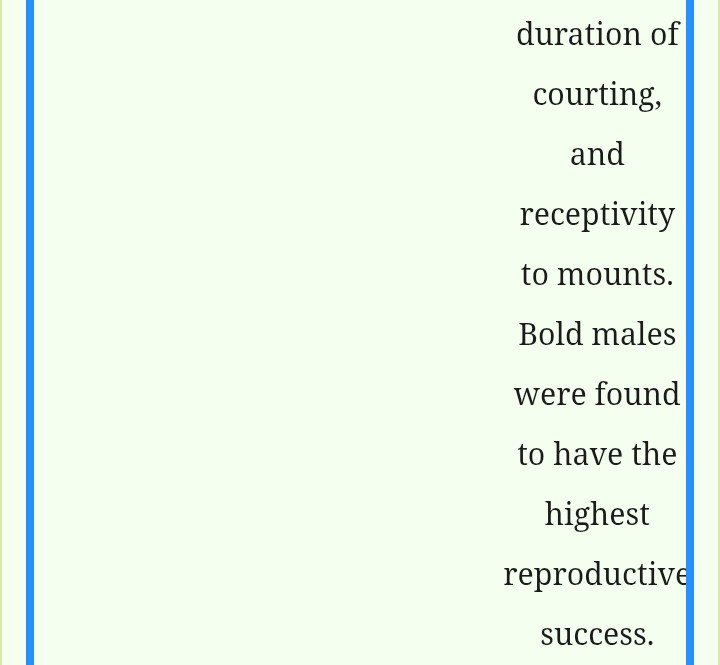
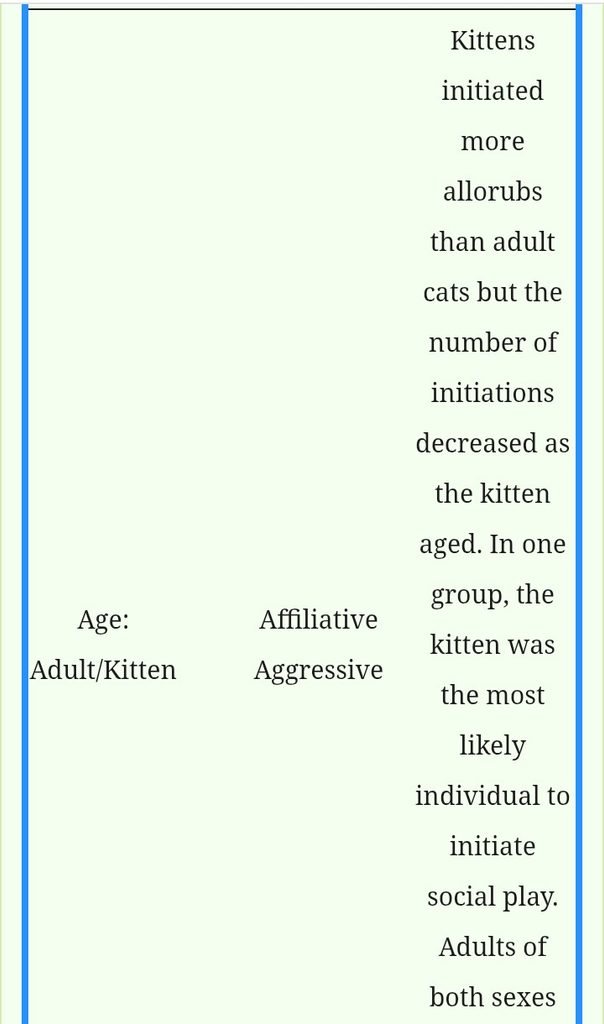
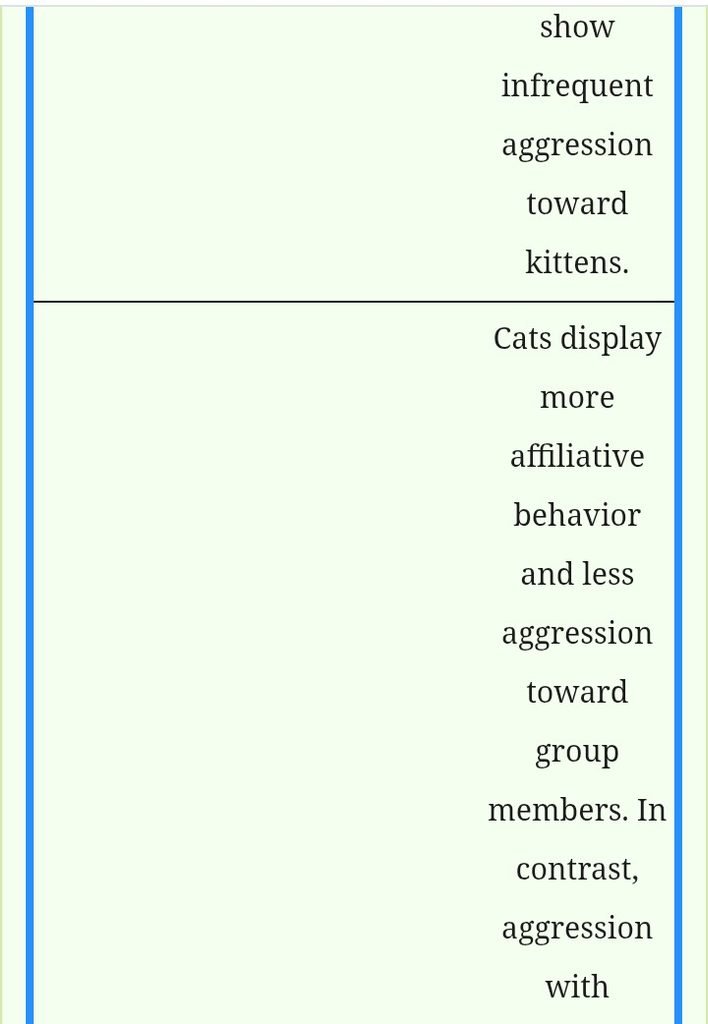
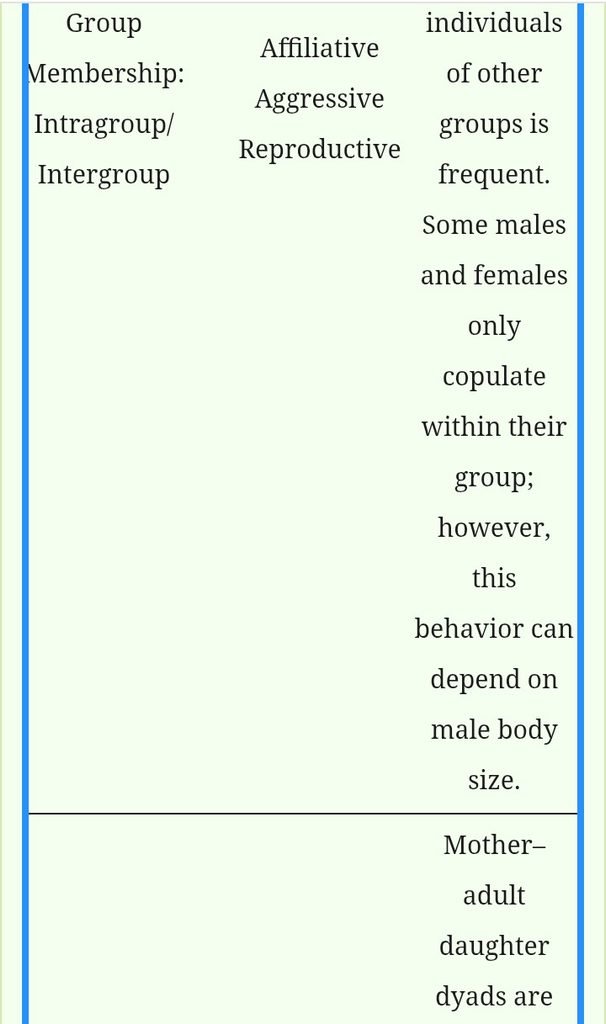
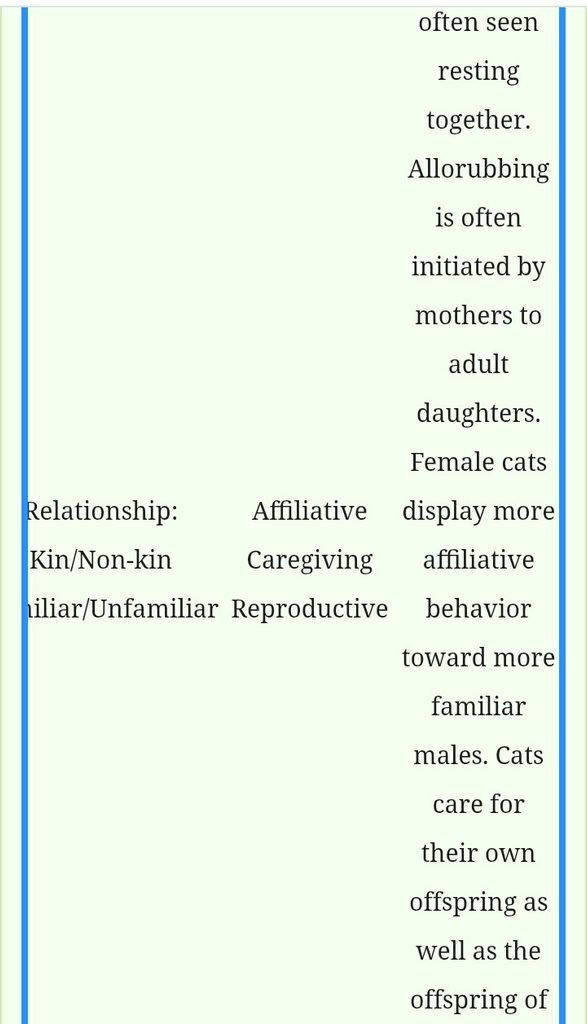
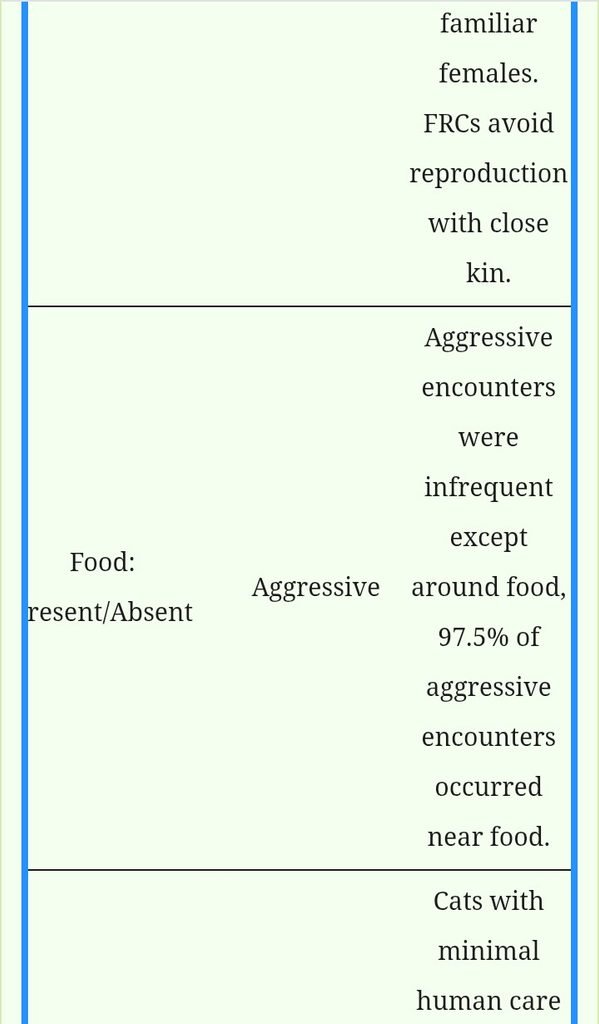
A pesquisa identificou diversos locais que variam quanto ao número aproximado de gatos de vida livre (FRCs) observados na área de estudo. O número de indivíduos varia consideravelmente, indo de 4 indivíduos em Church Farm [44] — vivendo a uma densidade de 6 gatos por km² [4] — a mais de 200 gatos adultos em Ainoshima [46], com uma densidade de 2.350 gatos por km² [4]. As interações intraespecíficas analisadas nesses estudos foram agrupadas em quatro categorias comportamentais principais: comportamento de afiliação, comportamento de cuidado, comportamento agressivo e comportamento reprodutivo. Os resultados indicam que diversos fatores influenciam a manifestação desses comportamentos. A Tabela 2 apresenta o fator, as categorias comportamentais influenciadas e um resumo da influência observada.
4.1.2. Comportamento afiliativo
Vários comportamentos de afiliação foram observados ou mensurados em pesquisas realizadas com colônias de gatos de vida livre (Free-Roaming Cats – FRCs). O allogrooming (ou limpeza mútua) consiste no comportamento de limpar um parceiro social. Durante uma sessão de allogrooming, o gato pode lamber ou morder suavemente a pelagem de um indivíduo da mesma espécie [21]. O allogrooming foi observado entre FRCs que viviam no Portsmouth Dockyard [24], e o ato de lamber foi o comportamento interativo registrado com maior frequência na colônia de Church Farm, representando mais da metade (53,4%) de todas as interações observadas [44]. Os gatos da colônia de Church Farm também exibiam allogrooming de forma preferencial. Por exemplo, os autores descrevem um macho adulto (identificado apenas como “TM”), suposto pai de duas fêmeas adultas de ninhadas diferentes, chamadas de “PI” e “DO”. TM participou de um número significativamente maior de interações com DO e apresentava maior probabilidade de interagir com ela do que com outras fêmeas (PI ou “SM”, outra fêmea adulta). Observou-se que TM lambia DO em 77% dos encontros iniciados por ele, enquanto DO lambia TM em 40,7% dos encontros iniciados por ela.
O allorubbing (ou roçar mútuo) é o comportamento de esfregar a cabeça ou o corpo contra um parceiro social (Figura 2a). Esfregadas de cabeça foram observadas entre gatos de vida livre (FRCs) que viviam no Portsmouth Dockyard [24], e o allorubbing representou 15,7% das interações dos gatos em Church Farm [44]. Além disso, Macdonald et al. constataram que a ocorrência de allorubbing indica uma relação social entre os gatos. Esse comportamento pode ser utilizado como uma medida da posição social dentro da colônia. Macdonald et al. observaram que o fluxo de allorubbing é assimétrico e tende a ser iniciado principalmente por fêmeas adultas em direção a machos adultos, entre fêmeas adultas, de mães para filhas adultas, de fêmeas adultas para filhotes, de filhotes para os indivíduos que os amamentam com mais frequência e de gatos anteriormente subordinados para gatos dominantes que haviam demonstrado agressividade. Não se observou uma hierarquia linear ao analisar o allorubbing; no entanto, o comportamento fluía de gatos “periféricos” para gatos “centrais” situados no núcleo da colônia.
Permanecer próximo ou manter contato físico, como dormir junto, também são comportamentos de afiliação observados em colônias de vida livre (FRCs) (Figura 2c,d). Na colônia de Church Farm, os gatos tendiam a passar o tempo próximos uns dos outros [44]. Todos os adultos foram observados próximos a outro gato (a uma distância de até 10 m) em mais de 50% das varreduras de observação. Os gatos também apresentavam preferências distintas quanto aos arranjos para dormir. Alguns indivíduos preferiam dormir sozinhos, enquanto outros dormiam em contato físico com outros gatos (Figura 2c). Os gatos foram encontrados dormindo sozinhos em 31,7% das varreduras e em contato físico com um ou mais gatos em 16% delas. No entanto, individualmente, um gato foi encontrado dormindo sozinho em 70,9% das varreduras, ao passo que outro foi encontrado dormindo sozinho em apenas 32,1% delas. Em vez disso, esse outro gato passava o tempo dormindo próximo a apenas um outro indivíduo da mesma espécie em 43,1% das varreduras e próximo a vários indivíduos em 24,9% delas.
Em outro estudo, Page e colaboradores examinaram o comportamento de uso da área de vida de gatos de vida livre (FRCs) que habitavam o complexo portuário de Avonmouth, em Bristol, Inglaterra, utilizando radiotelemetria [26]. As observações incluíram registros de “contato efetivo”, ou seja, situações em que dois gatos estavam cientes da presença um do outro. Embora os gatos apresentassem uma sobreposição significativa em suas áreas de vida, frequentemente não estabeleciam “contato efetivo” entre si. Sessenta e três por cento (120/190) das áreas de vida sobrepunham-se; no entanto, observou-se “contato efetivo” entre os gatos em apenas 33 desses casos de sobreposição. Isso pode indicar que, embora esses gatos compartilhem o espaço do complexo portuário, eles podem não estar compartilhando o local temporalmente. Contudo, observou-se variabilidade individual. Alguns machos foram vistos regularmente passando tempo juntos, e um macho passou a maior parte do tempo com uma fêmea específica.
A brincadeira social — ou seja, quando dois ou mais indivíduos interagem brincando com contato físico ou voltados para um objeto comum — também foi observada em FRCs (Figura 1b e Figura 3c,d). A brincadeira social entre coespecíficos pode envolver comportamentos como perseguir, desferir golpes com a pata (tapas no coespecífico) e lutar (wrestling). Durante uma sessão de luta, os gatos podem morder um ao outro (especialmente na parte frontal ou posterior do pescoço do coespecífico) e realizar movimentos de “raspar” com as patas traseiras contra o coespecífico (isto é, mover as patas rapidamente para frente e para trás) (K. Vitale, Observação). Como mencionado, os comportamentos envolvidos na brincadeira podem se sobrepor àqueles categorizados como agressão (por exemplo, perseguição, golpes com a pata, mordidas); no entanto, distinguem-se da agressão por serem realizados de maneira “não séria” e sem que o gato demonstre intenção de ferir [21]. A brincadeira pode ser identificada pela ausência de vocalizações agressivas (por exemplo, rosnados, uivos), por pausas breves na interação nas quais os gatos se distraem (ou seja, a atenção se desvia do coespecífico para outros aspectos do ambiente antes de retomar a atividade), pela inibição dos comportamentos (isto é, as mordidas não provocam sangramento e os golpes com a pata são desferidos com as garras retraídas) e pelo fato de a brincadeira poder ser precedida ou seguida por outros comportamentos de afiliação (K. Vitale, Observação).
Entre os gatos da colônia Church Farm, constatou-se a ocorrência de brincadeiras sociais com frequência em alguns dias, enquanto em outras elas raramente ou nunca ocorriam [44]. Macdonald et al. relacionamos a proporção de interações iniciadas por um gato em relação a outro para cada tipo de comportamento. Embora TM (macho adulto) tenha iniciado lambeduras com SM (fêmea adulta) em 70,1% das interações que ele próprio iniciou, ele nunca fez brincadeiras com ela. TM fez brincadeiras com apenas um gato, PI (fêmea adulta), mas o mesmo isso aconteceu raramente (apenas 0,6% das interações iniciadas por ele). Por outro lado, a TM recebia frequentemente convites para brincar de um filhote chamado “LU”. Nos encontros que LU iniciou com TM, em 50% das vezes o filhote propunha uma brincadeira. Na verdade, LU participava frequentemente de brincadeiras sociais. Em relação às fêmeas adultas, as porcentagens de interações iniciadas por LU que consistiam em brincadeiras foram: 42,6% com SM (mãe de LU), 65,9% com PI e 83,9% com DO. Isso não significa que nenhuma fêmea adulta tenha iniciado brincadeiras. Verificou-se que 29,3% das interações iniciadas por PI com DO eram brincadeiras, assim como 23,4% das interações iniciadas por DO com PI. No entanto, PI e DO iniciaram brincadeiras com outros coespecíficos com menor frequência (entre 8,4% e 13,4% das interações iniciadas). Este estudo indica que as brincadeiras sociais entre gatos de vida são livres variadas e podem ser direcionadas preferencialmente a alguns coespecíficos em detrimento de outros.
Comportamentos afiliativos também são comuns durante interações de saudação. Dois comportamentos relacionados a saudações entre gatos de colônias de vida livre (FRCs) incluem o contato focinho com focinho (ou “cheirar o focinho”), no qual dois gatos se aproximam e tocam os focinhos, e o sinal de “cauda erguida”, no qual o gato mantém a cauda em posição vertical. A ponta da cauda pode se curvar levemente para um dos lados [21,39] (Figura 2b). No estaleiro de Portsmouth (Portsmouth Dockyard), o comportamento de saudação observado com maior frequência foi o sinal de cauda erguida [24]. Um estudo realizado em Garbatella, Roma, examinou a função social da cauda erguida [39]. Verificou-se que esse sinal era frequentemente observado de forma isolada, não sendo comum sua associação com outros comportamentos sociais, como a fricção mútua do corpo (allorubbing) ou o contato focinho com focinho. A ocorrência simultânea da cauda erguida com outro comportamento afiliativo foi registrada em apenas 22,7% dos casos. No entanto, observou-se variação individual entre os gatos. Alguns exibiam frequentemente a cauda erguida antes da fricção mútua e tendiam a apresentar esse comportamento preferencialmente em relação a indivíduos específicos da mesma espécie. O contato focinho com focinho raramente ocorria simultaneamente à cauda erguida. Em termos de hierarquia social, a posição do gato no grupo influenciava o uso desse sinal. Gatos de hierarquia inferior exibiam a cauda erguida com mais frequência, enquanto gatos de hierarquia superior eram os que mais frequentemente recebiam esse sinal. Esses resultados indicam que a posição hierárquica no grupo influencia o uso do sinal de cauda erguida [39], sendo este mais comumente utilizado por indivíduos de hierarquia inferior em direção aos de hierarquia superior. Em suma, Cafazzo e Natoli afirmam que “a cauda erguida não é simplesmente um comportamento de saudação” (p. 64).
Os resultados desses estudos destacaram vários fatores que influenciam a manifestação de comportamento afiliativo (Tabela 2). O sexo do gato pode afetar a ocorrência de comportamento afiliativo e o parceiro social a quem esse comportamento é direcionado. Em diversos estudos, as fêmeas adultas tendem a ser as iniciadoras. No estaleiro de Portsmouth (Portsmouth Dockyard), observou-se que o comportamento afiliativo era iniciado com mais frequência por fêmeas do que por machos, e não se registrou a ocorrência de comportamento afiliativo entre os machos [24]. As fêmeas também exibiam mais comportamento afiliativo em relação a machos com os quais já estavam mais familiarizadas. Na colônia de Church Farm, os machos eram tipicamente os receptores de interações iniciadas por fêmeas, enquanto as fêmeas recebiam interações de filhotes [44]. No Regent’s Park, comportamentos afiliativos eram frequentemente observados entre fêmeas e machos adultos ou entre fêmeas, mas os machos não exibiam esse comportamento uns com os outros [32]. Em Garbatella, constatou-se que as fêmeas tipicamente exibiam a postura de cauda erguida e esfregavam-se nos machos (comportamento de allorubbing), ao passo que os machos frequentemente cheiravam o focinho das fêmeas [39]. Por outro lado, entre os gatos do estaleiro de Avonmouth (Avonmouth Dockyard), não foram observados “contatos efetivos” entre fêmeas, embora alguns machos fossem vistos juntos regularmente [26]. Laundré também observou que os machos iniciavam mais encontros afiliativos do que as fêmeas, sendo que a maioria desses encontros decorria das ações de dois machos específicos [43]. As fêmeas desse grupo também preferiam encontros afiliativos com machos a encontros com outras fêmeas. Embora o sexo pareça ser um fator importante na manifestação de comportamento afiliativo, a influência exata pode variar devido às características individuais dos gatos envolvidos, à natureza do relacionamento da dupla ou às condições ambientais (como densidade populacional felina, disponibilidade de alimento ou distribuição de alimento).
A castração também parece ser um fator importante que influencia o comportamento de afiliação. Em um estudo, comportamentos de afiliação tornaram-se mais frequentes após a castração em ambos os sexos [32]. Outro estudo, que observou 184 indivíduos em quatro grupos de alimentação (dois compostos por animais castrados e dois por animais não castrados), constatou que, em comparação com os grupos de castrados, um dos grupos de não castrados apresentava uma taxa significativamente maior de comportamento de afiliação por gato [33]. Um estudo realizado em Garbatella verificou que, após a castração, os gatos passavam menos tempo próximos a outros membros da mesma espécie [40]. No entanto, algumas duplas de machos passaram a exibir com mais frequência comportamentos de esfregar o corpo (allorubbing) e de tocar o focinho no do outro. Machos que nunca haviam demonstrado esses comportamentos de afiliação antes da castração passaram a fazê-lo após o procedimento; além disso, esses machos também passaram um pouco mais de tempo próximos uns dos outros após a castração.
Como mencionado, a individualidade do próprio gato pode influenciar a manifestação de comportamentos afiliativos. Na colônia de Church Farm, alguns gatos tendiam a iniciar interações, enquanto outros tendiam a ser os receptores dessas interações [44]. Os gatos também demonstravam “afiliações preferenciais” ou preferências individuais por certos coespecíficos dentro da colônia. Sobre a colônia de Church Farm, Macdonald e colaboradores afirmaram que “existem muitas relações não aleatórias entre esses gatos” (p. 45). Por outro lado, Laundré observou poucos comportamentos afiliativos entre os gatos na fazenda de laticínios [43]. Os comportamentos observados incluíam o ato de esfregar o corpo (allorubbing) e o toque de focinhos durante saudações e, como mencionado, decorriam principalmente da interação entre dois indivíduos. O conjunto de estudos que examina o comportamento afiliativo em colônias de gatos de vida livre (FRC) indica a existência de variabilidade tanto na sociabilidade dos indivíduos do grupo quanto nas associações entre os membros do grupo.
4.1.3. Comportamento de cuidado
Os comportamentos de cuidado são importantes para a sobrevivência dos filhotes e para a formação de um vínculo de apego entre a gata e sua ninhada. Esses comportamentos incluem ações de apego, como a busca por proximidade e contato, bem como a amamentação, o comportamento de permanência no abrigo e a limpeza mútua (allogrooming) [19,20]. Em um estudo realizado em Ainoshima, Izawa e Ono examinaram as relações entre gatas e suas crias [30]. Cerca de 200 gatos adultos viviam na área, e foram observados 72 locais de reprodução com ninhadas. As fêmeas apresentaram comportamentos de afiliação, como descansar juntas. Algumas dessas fêmeas eram parentes — como pares de mãe e filha —, enquanto outras não tinham grau de parentesco conhecido. Tanto machos quanto fêmeas demonstraram tolerância em relação aos filhotes, mas apenas as fêmeas exibiram comportamentos de cuidado. Observou-se a amamentação cooperativa; notou-se que as fêmeas realizavam a limpeza e amamentavam filhotes que não eram seus próprios descendentes. Duas mães foram vistas compartilhando os cuidados com os filhotes sem distinguir os seus próprios. Ao longo do estudo, foram observados 19 casos de cuidado cooperativo: 9 ocorreram entre pares de mãe e filha, 5 entre irmãos da mesma ninhada e, nos 5 restantes, o grau de parentesco entre os pares era desconhecido.
O comportamento de cuidado de gatos que viviam na Church Farm também foi observado [44]. O uso compartilhado de abrigos e o comportamento aloparental foram observados exclusivamente em fêmeas, representando 7,6% da atividade observada dos gatos. Verificou-se também que as fêmeas adultas amamentavam e cuidavam de filhotes de forma indiscriminada. Ao longo de dois anos de observação, todos os 12 pares de fêmeas reprodutoras que poderiam ter amamentado a prole uma da outra foram observados fazendo isso, e 8 dos 9 pares foram vistos compartilhando um ninho com filhotes. No caso de pares formados por uma fêmea adulta e um filhote, a maioria das interações iniciadas pelas fêmeas consistia na adulta lambendo o filhote. Por outro lado, os filhotes iniciavam mais comportamentos de esfregar o corpo (allorubbing) do que os gatos adultos. No entanto, a frequência com que os filhotes iniciavam interações com as fêmeas diminuía à medida que eles cresciam. Os filhotes interagiam de maneira diferenciada com as diferentes fêmeas, tanto em frequência quanto em qualidade, o que indica a existência de relações sociais. Contudo, eles também mamavam em fêmeas adultas que não eram suas mães, o que aponta para a ocorrência de cuidado cooperativo.
4.1.4. Comportamento agonístico
Pesquisas examinaram tanto comportamentos agressivos quanto submissos em colônias de gatos de vida livre (FRCs). Os comportamentos agressivos incluem a adoção de posturas agressivas (bem como investidas ou perseguições), vocalizações agressivas (por exemplo, rosnados e uivos) e golpes com as patas. Os comportamentos submissos incluem a fuga (afastar-se rapidamente do local), o rolamento social e a exibição de uma postura corporal retraída ou agachada [21].
Gatos também podem se envolver em “brigas reais”, ou seja, confrontos agressivos que envolvem contato físico direto. No entanto, no Estaleiro de Portsmouth, observaram-se poucas brigas com contato físico direto entre os gatos [24]. Em vez disso, a maioria das interações agonísticas envolvia posturas de ameaça ritualizadas e vocalizações. Um comportamento que merece destaque era o desvio da cabeça: em vez de olharem diretamente um para o outro, os gatos viravam a cabeça em ângulo reto para evitar o contato visual direto. Embora as brigas fossem incomuns, a agressividade de machos em relação às fêmeas era particularmente rara.
Da mesma forma, comportamentos agressivos na Church Farm eram pouco frequentes [44]. A agressividade era raramente observada entre membros adultos do núcleo da colônia, representando apenas 4,9% das interações observadas. No entanto, durante encontros entre membros da colônia e gatos de um grupo externo, comportamentos agressivos eram comuns, constituindo 53,7% das interações entre grupos. Nesses casos, os gatos do núcleo da colônia quase sempre iniciavam a agressão. Frequentemente, o início de uma agressão contra um gato externo por parte de um gato do núcleo resultava em comportamento cooperativo de outros membros do grupo para expulsar o estranho.
A hierarquia social também pode ser analisada por meio dos resultados de interações agonísticas. Por exemplo, a hierarquia social de gatos de colônia que viviam em Garbatella foi examinada [38]. Cada indivíduo em uma díade foi classificado hierarquicamente. Os gatos classificados como “dominantes” eram aqueles que exibiam mais comportamentos agressivos do que recebiam, ou que recebiam mais comportamentos de submissão do que exibiam. Gatos de hierarquia social mais elevada exibiam mais comportamentos agressivos; quanto mais alta a posição na hierarquia, mais agressivo era o gato. Laundré descreveu uma hierarquia social de fêmeas com uma fêmea “alfa” e uma “beta” [43]. No entanto, a hierarquia social abaixo das fêmeas dominantes não foi bem documentada, e a classificação dos machos não foi determinada, pois eles exibiam pouca agressividade uns com os outros. Finkler e Terkel constataram que fêmeas não castradas socialmente mais dominantes também apresentavam níveis mais elevados de cortisol (uma medida comum de estresse; níveis altos de cortisol indicam maior estresse) em comparação com fêmeas não castradas menos dominantes [36].
Dado que grupos de gatos de vida livre (FRC) tendem a se formar em locais com oferta abundante de alimento, não surpreende que a presença de comida seja também um fator-chave que influencia o comportamento social. De modo geral, Laundré observou que encontros agressivos eram pouco frequentes entre os gatos [43]. A exceção ocorria perto do horário de alimentação; praticamente todos (97,5%) os encontros agressivos davam-se no momento em que leite era oferecido aos animais. À medida que o horário da refeição se aproximava, os gatos se reuniam na área de alimentação, sendo notado um aumento na agressividade. Observou-se um aumento acentuado da agressividade um minuto antes da alimentação; o comportamento cessava no momento em que a comida era servida e voltava a aumentar cerca de 30 segundos após a oferta do alimento, diminuindo novamente apenas após cinco minutos, quando os indivíduos começavam a se dispersar. Esse achado é corroborado por outro estudo, que constatou que o agrupamento de gatos ao redor do local de alimentação vinha acompanhado de um aumento de comportamentos agonísticos [33].
A presença de alimento também influenciou a posição social. Observou-se que os machos ocupavam posições mais dominantes na ausência de alimento, enquanto as fêmeas ascendiam na hierarquia social no local de alimentação [38]. Embora os filhotes ocupassem a posição mais baixa na hierarquia, frequentemente eram os primeiros a se alimentar no local. Esse fato, somado às descobertas de Izawa e Ono — de que os filhotes eram tolerados no grupo de alimentação de suas mães e de que adultos de ambos os sexos raramente demonstravam agressividade em relação a eles [30] —, indica que os gatos de vida livre adultos demonstram certo nível de tolerância social para com os filhotes.
É possível que o sexo ou alterações na atividade sexual também sejam fatores importantes que influenciam o comportamento agressivo. Como mencionado, a agressividade de machos em relação a fêmeas pode ser rara [24]. No entanto, a manifestação de agressividade não parece diferir entre os sexos. Entre os gatos que viviam em Garbatella, o comportamento agressivo não diferiu significativamente entre machos e fêmeas [38]. Quanto ao status reprodutivo, o impacto da castração no comportamento agressivo é variável. Em um estudo, a agressividade foi rara tanto antes quanto após a castração [32]. Em outro trabalho, grupos de gatos castrados exibiram menos agressividade do que grupos de gatos não castrados [33] e, em comparação com gatos não castrados, os castrados apresentaram frequências mais baixas de comportamento agonístico [35]. Comportamentos agressivos também foram analisados em relação aos níveis de cortisol [34]. Comparadas às fêmeas não castradas, as fêmeas castradas exibiram menos agressividade e níveis reduzidos de cortisol. Fêmeas não castradas que exibiram mais agressividade também apresentaram níveis mais elevados de cortisol em comparação com as fêmeas não castradas menos agressivas.
Outros fatores também podem ser importantes. O contexto da alimentação pode influenciar o efeito da castração. Na ausência de alimento, o comportamento agressivo diminuiu após a castração [40]. No entanto, a castração não teve efeito sobre os comportamentos agressivos e submissos na presença de alimento. Quanto à hierarquia social, a situação dos gatos manteve-se estável ao longo do tempo, e a ordem hierárquica não se alterou após a castração. Por fim, o nível de cuidados humanos também pode influenciar o comportamento agressivo. Em um estudo, gatos que recebiam cuidados humanos mínimos apresentaram maior agressividade do que aqueles que recebiam cuidados máximos [35]. Em suma, atividades humanas como a esterilização, o fornecimento de alimento e o nível de cuidados, bem como características de outros indivíduos da mesma espécie (como idade ou o relacionamento entre eles), são fatores importantes que influenciam o comportamento agressivo em diferentes graus (Tabela 2).
4.1.5. Comportamento reprodutivo
Comportamentos reprodutivos, como corte, monta e cópula, foram observados em gatos de áreas portuárias (FRCs). No caso dos gatos do estaleiro de Portsmouth, observou-se a ocorrência de comportamento reprodutivo na maioria dos meses [24]. O comportamento de corte observado com maior frequência foi a “espera”. Essa espera consistia em o macho permanecer próximo à fêmea e segui-la caso ela se afastasse. Durante o acasalamento, esses gatos emitem diversas vocalizações. Machos e fêmeas no cio no estaleiro de Avonmouth vocalizavam um para o outro ao se deslocarem separadamente [26], e gatos machos em Ainoshima emitiam vocalizações de acasalamento, além de exibirem comportamentos relacionados à corte e à cópula [27,28]. Os machos também podem se envolver em disputas vocais [47].
De modo geral, relatos de agressividade entre machos durante o cortejo foram pouco frequentes. Não houve evidências de competição entre machos pelo acesso a fêmeas no cio [26], nem foram observadas brigas [24] ou agressividade entre machos que aguardavam a oportunidade de acasalar [47]. Quando interações agressivas ocorreram durante o cortejo, elas se deram entre machos e fêmeas, sendo iniciadas por fêmeas não receptivas [24]. Uma exceção a esse padrão ocorre em Ainoshima, onde encontros agressivos eram frequentes quando os machos se reuniam ao redor de uma fêmea após ela entrar no cio [27, 28, 29, 31].
Vários fatores podem influenciar o comportamento reprodutivo, incluindo o tamanho corporal, a integração ao grupo social e as características individuais do gato. O grau de parentesco também é um fator importante. Observou-se que as fêmeas evitavam a cópula com parentes, pelo menos com aqueles com grau de parentesco próximo [31]. Os machos também realizavam menos tentativas de acasalamento com fêmeas aparentadas, e as tentativas observadas eram aceitas com menor frequência pelas fêmeas. Quanto ao tamanho corporal, machos mais pesados tendiam a cortejar mais fêmeas [28], e o peso corporal de um macho apresentava correlação significativa tanto com o número de cópulas quanto com a taxa de cópula. Isso indica que machos mais pesados obtêm maior sucesso reprodutivo [27]. Em outro estudo, machos de maior porte apresentavam uma hierarquia social mais elevada dentro do grupo e também maior sucesso reprodutivo [29]. No entanto, nem todos os estudos demonstraram consistentemente uma relação entre tamanho corporal e agressividade. Outra pesquisa não encontrou correlação entre a média de sucesso na cópula ou na monta e o peso ou a idade dos machos [31]. Contudo, observou-se uma relação entre o tamanho corporal das fêmeas e a aceitação das tentativas dos machos. Em comparação com fêmeas mais pesadas e com ciclos mais longos, fêmeas mais leves e com ciclos estrais mais curtos aceitavam as montas com maior frequência. Além disso, comparadas às fêmeas mais jovens e pesadas, as fêmeas mais velhas e leves também aceitavam a cópula com maior frequência.
Outro fator que influencia o comportamento reprodutivo é se o indivíduo da mesma espécie pertence ao mesmo grupo social. Em um estudo, observou-se que alguns machos cortejavam e copulavam apenas com fêmeas do seu próprio grupo, não chegando a copular com fêmeas de outros grupos. Curiosamente, essa tendência de permanecer dentro do grupo foi frequentemente observada em machos de menor peso. Por outro lado, machos mais pesados e de porte médio cortejavam fêmeas de grupos externos, além daquelas do seu próprio grupo [28]. No entanto, quando tentavam cortejar fêmeas de outros grupos, muitas vezes não conseguiam se aproximar delas tanto quanto conseguiam das fêmeas do seu próprio grupo. Mesmo quando tentavam acasalar com fêmeas de outros grupos, suas tentativas eram frequentemente frustradas pela agressividade de machos mais leves pertencentes àquele grupo social. Esse tipo de comportamento reduz o sucesso de cópulas entre grupos distintos [27]. A preferência por permanecer dentro do grupo também foi observada nas cópulas das fêmeas. Elas copulavam com mais frequência com machos do seu próprio grupo social. Setenta e sete por cento das cópulas ocorreram com machos do mesmo grupo social, 12,9% com machos de um grupo diferente e 9,7% com machos que não pertenciam a nenhum grupo [27]. Isso indica que o pertencimento a um grupo social influencia o comportamento reprodutivo dos FRC.
A individualidade dos gatos também pode influenciar o comportamento reprodutivo. Em Ainoshima, cada macho cortejava aproximadamente 3 fêmeas, mas houve variação individual, com estudos registrando faixas de 1 a 11 fêmeas [27] e de 1 a 9 fêmeas [28]. Além disso, alguns machos cortejavam uma fêmea por um longo período (>10% das observações), enquanto outros o faziam por um período curto (<5% das observações) [37]. Em outro estudo, alguns machos passavam mais tempo cortejando fêmeas ou cortejavam um número maior de fêmeas do que outros gatos [47]. As fêmeas também apresentaram variação individual quanto à receptividade às montas e à cópula; no entanto, elas tendiam a ser mais seletivas em relação aos machos durante a cópula do que durante a monta [31]. Observações adicionais em Garbatella, Fori di Traiano e no Parque do Hospital Croix Rousse indicam que a individualidade dos gatos está associada ao sucesso reprodutivo anual. Verificou-se que os machos com temperamento ousado apresentavam o maior sucesso reprodutivo [41].
O estado de saúde de um indivíduo também pode influenciar o comportamento reprodutivo. Um temperamento audaz também foi associado a uma maior probabilidade de infecção pelo vírus da imunodeficiência felina (FIV). Um gato FIV-positivo é portador de uma doença causada pelo vírus que compromete o seu sistema imunológico. Outro estudo realizado na colônia Croix Rousse investigou se o FIV afetava o comportamento de acasalamento dos gatos da colônia e constatou que os machos infectados pelo vírus eram os que mais realizavam a monta em fêmeas [48]. Das sete montas registradas, cinco foram realizadas por machos infectados pelo FIV. Além disso, observou-se que machos socialmente dominantes tendiam a estar infectados pelo FIV [49]. Isso é compreensível, visto que o FIV é transmitido por meio de mordidas, as quais podem ocorrer durante brigas reais. Tais achados podem indicar que a transmissão do FIV é influenciada pelo status social do gato e ocorre com maior frequência por parte de machos socialmente dominantes.
A hierarquia social também pode influenciar outros comportamentos reprodutivos. Em um estudo, não houve diferença no tempo gasto cortejando fêmeas com base na hierarquia social [49]. Gatos machos de hierarquia mais elevada não dedicaram significativamente mais tempo ao cortejo do que aqueles de hierarquia inferior. No entanto, outro estudo realizado no Fori di Traiano analisou a direcionalidade de comportamentos agressivos e submissos como medida de hierarquia social. Nesse caso, constatou-se que a hierarquia social era um fator que influenciava o sucesso reprodutivo dos machos. O macho mais dominante gerou a maior porcentagem de filhotes. Contudo, os gatos de hierarquia mais alta não controlavam o acesso às fêmeas, e 78% das ninhadas apresentaram paternidade múltipla.
Podem ocorrer comportamentos sociais adicionais, como a monta entre machos (MM) observada em FRCs em Ainoshima [29]. Os machos foram classificados como: aqueles que montavam outros machos (machos MM), aqueles que eram montados por outros machos (machos RM) ou aqueles que não apresentavam comportamento de monta entre machos (machos NM). Em um período de um ano, foram registrados 26 casos de monta MM envolvendo 14 díades de machos. Em 50% desses encontros, observou-se também o movimento de estocada pélvica; no entanto, não se sabia se ocorria ejaculação. Desses 26 casos, 20 ocorreram quando os machos haviam acabado de desviar a atenção de uma fêmea para um macho próximo, e 6 casos ocorreram após a fuga da fêmea no cio. A idade influenciou o comportamento MM: machos mais velhos tendiam a montar, enquanto machos mais jovens tendiam a ser montados. Isso indica que as montas MM provavelmente não eram um “treino” para as montas com fêmeas (caso contrário, esperar-se-ia uma maior frequência de MM entre machos mais jovens). Ao contrário do observado nas interações entre machos e fêmeas no que diz respeito à permanência no grupo [27,28], a maioria das montas MM ocorreu entre machos de grupos diferentes (19 casos de MM intergrupo e apenas 7 intragrupo) [29]. A monta MM foi observada apenas durante as épocas de cio das fêmeas. A ocorrência de comportamento MM não afetou o comportamento direcionado às fêmeas, e machos MM e NM apresentaram sucesso semelhante no cortejo e na cópula.
Uma observação final deve ser feita sobre os casos documentados de infanticídio em colônias de gatos de vida livre (Free-Roaming Cats – FRCs). Seis ocorrências espontâneas de infanticídio foram observadas diretamente por Pontier [45]. Tais ocorrências foram registradas durante a coleta de dados para outro projeto de pesquisa. O número de filhotes mortos variou de 1 a 4, com uma média de 3. Todos os machos que praticaram o infanticídio pareciam ser adultos, eram desconhecidos do autor e não pertenciam ao grupo focal. Todos os filhotes mortos eram jovens, com poucas semanas de vida, e foram mortos quando o macho mordia seus pescoços, segurando-os e sacudindo-os vigorosamente. Isso matava os filhotes imediatamente; em seguida, o macho deixava o corpo do filhote intacto. Apenas um caso diferiu desse padrão: o filhote foi morto por uma mordida no abdômen e seu corpo foi parcialmente consumido. Em resposta ao comportamento de infanticídio, observou-se que todas as fêmeas apresentavam comportamento agressivo em relação aos machos. Em um dos casos, um macho que praticava infanticídio matou um filhote, mas acabou sendo expulso tanto pela fêmea (que havia perdido filhotes anteriormente em outro caso de infanticídio) quanto por um macho residente. Embora o comportamento cooperativo tenha sido bem-sucedido, tanto o macho quanto a fêmea residentes sofreram ferimentos durante a interação.
Como essa população vinha sendo monitorada há vários anos, sabia-se que a ocorrência de infanticídio era relativamente rara, afetando apenas 6,6% das ninhadas [45]. Um caso de infanticídio também foi registrado em Church Farm [44]. Observou-se que um macho estranho, que não pertencia à colônia, matou seis filhotes (mordendo a parte posterior do crânio) antes de ser atacado e afugentado por três fêmeas adultas [44]. Conforme discutido por Pontier e Natoli, esse comportamento parece ser, em geral, relativamente raro entre gatos em ambientes rurais e inexistente entre aqueles que vivem em ambientes urbanos [45]. Uma explicação possível para isso reside na diferença quanto à disponibilidade de parceiras. Machos que vivem em áreas urbanas — especialmente em ambientes de alta densidade populacional — têm mais oportunidades de acasalar com fêmeas; já os machos em áreas rurais, onde as fêmeas podem estar mais dispersas, têm menos oportunidades de reprodução e, consequentemente, podem precisar adotar comportamentos mais competitivos para obter acesso a elas. No entanto, também é possível que esse comportamento seja atípico, decorrente de outras condições ambientais, ou que tenha uma base genética. Em suma, os autores sugerem que o infanticídio de filhotes parece ser mais uma “tática comportamental” do que uma “característica específica da biologia populacional dos gatos” (p. 448).
4.2. Interações interespecíficas
Um total de três artigos identificados na busca concentrou-se em interações entre gatos e outra espécie. Dois artigos abordaram interações entre gatos de vida livre e humanos, e um estudo focou em interações não predatórias entre gatos de vida livre e a fauna silvestre.
4.2.1. Locais de estudo
Gatos de vida livre (FRCs) podem ser encontrados vivendo perto de áreas de atividade humana, onde há disponibilidade de recursos e amplas oportunidades de interação social. Por exemplo, no Japão, esses gatos podem ser encontrados em ilhas, nas proximidades de santuários e nas ruas das cidades. Nesses locais, eles frequentemente se aproximam das pessoas, esfregam-se nelas e aceitam interações sociais, como brincadeiras e carícias (Figura 3). Um dos estudos identificados foi realizado no campus da Universidade de Nanjing, na província de Jiangsu, China [50]. Campi universitários são locais comuns para esses gatos, que frequentemente recebem alimento em pontos de alimentação. Áreas rurais, próximas a campos abertos ou bosques, também podem abrigar grupos desses animais. Um estudo de caso identificado na pesquisa analisou um grupo de gatos de vida livre que vivia nas imediações de um centro de saúde mental em Alma, Michigan, EUA [51]. Por fim, esses gatos habitam diversos ambientes e condições que podem atrair outros animais selvagens, como locais com pontos de alimentação ou áreas de descarte de resíduos. Foi identificado apenas um artigo que analisava as interações desses gatos com a fauna silvestre que compartilha o mesmo habitat. Os gatos em questão viviam na Ilha Jekyll, uma ilha de barreira com cerca de 5.847 acres situada na costa sudeste da Geórgia [52].
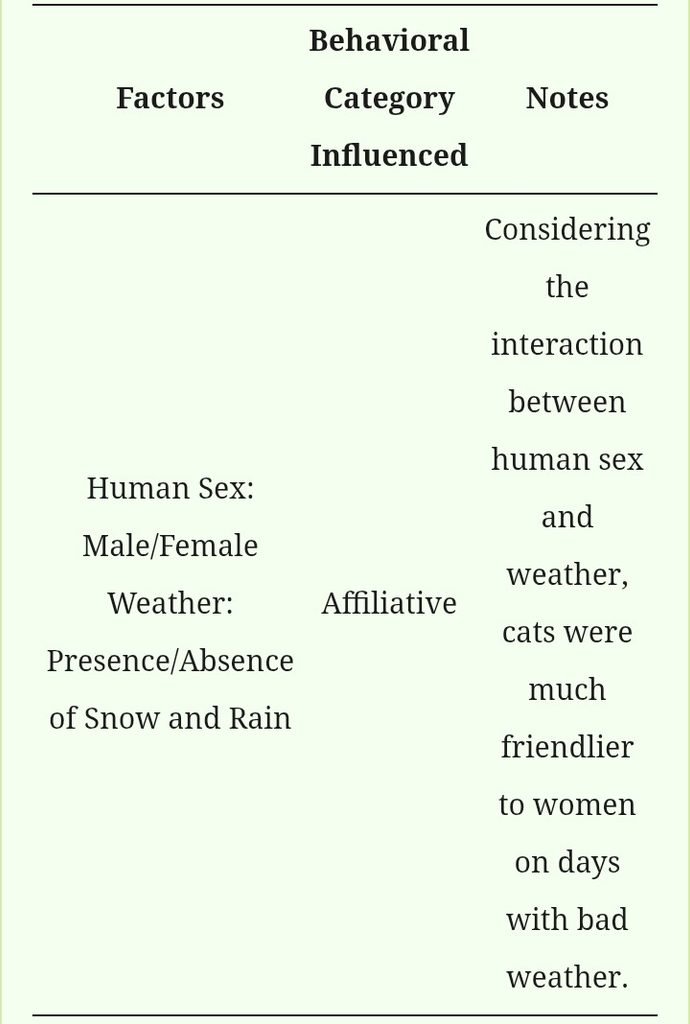
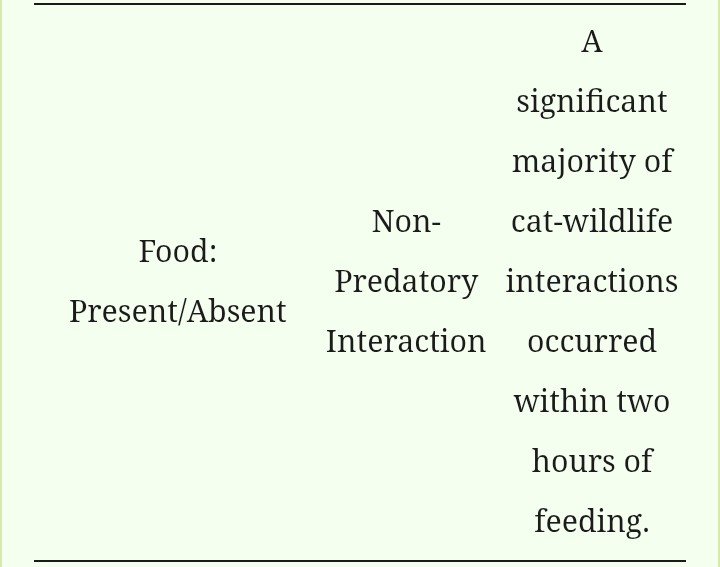
As interações interespecíficas foram agrupadas em duas categorias comportamentais principais: comportamento afiliativo com humanos e interações não predatórias com a fauna silvestre. Os resultados indicam que diversos fatores influenciam a ocorrência desses comportamentos. A Tabela 3 apresenta o fator, as categorias comportamentais influenciadas e um resumo da influência.
Tabela 3.
Fatores que influenciam o comportamento social interespecífico de FRC. São apresentadas as espécies envolvidas, os fatores, a categoria comportamental influenciada e um resumo de cada influência.
4.2.2. Comportamento Afiliativo
Comportamentos de afiliação ocorrem entre gatos de vida livre (FRCs) e humanos. Esses comportamentos podem incluir buscar proximidade ou contato com humanos (como aceitar carinho ou sentar no colo de uma pessoa) e interagir em brincadeiras com pessoas (Figura 3). No estudo realizado com gatos de vida livre no campus da Universidade de Nanjing, avaliou-se a resposta dos animais a uma pessoa desconhecida [50]. Foram observados comportamentos de afiliação específicos, e cada comportamento social recebeu uma pontuação. Os comportamentos de afiliação incluíam aproximar-se da pessoa, permanecer próximo a ela (a uma distância de até 1 metro), esfregar-se (nas pernas), vocalizar (como miar e ronronar) e brincar. Também foram registradas as reações dos gatos ao receberem carinho e ao serem segurados no colo. A soma de todos os comportamentos sociais demonstrados em relação à pessoa desconhecida constituiu a Pontuação de Socialização de cada gato. Uma pontuação alta indicava elevada sociabilidade em relação às pessoas, enquanto uma pontuação baixa indicava baixa sociabilidade. Os resultados indicam que gatos de vida livre exibem comportamento social de afiliação em relação aos humanos. Fatores que influenciam esses comportamentos incluem o sexo da pessoa e as condições climáticas no momento da interação. Independentemente das condições climáticas, os gatos mostraram-se mais sociáveis e amigáveis com mulheres do que com homens. Independentemente do sexo da pessoa, os gatos demonstraram maior sociabilidade em dias com condições climáticas adversas (presença de chuva ou neve) em comparação com dias de boas condições climáticas (sem chuva ou neve). Ao considerar a interação entre o sexo da pessoa e as condições climáticas, observou-se que os gatos eram muito mais amigáveis com mulheres em dias de mau tempo.
Gatos de vida livre (FRCs) também têm demonstrado comportamento social com humanos de maneiras inesperadas. O uso de Intervenções Assistidas por Animais (IAA) — ou seja, intervenções que incorporam um animal ao processo terapêutico — tem se tornado mais comum. Cães são frequentemente utilizados em IAAs; no entanto, o uso de animais não tradicionais, como gatos, tem recebido menos atenção. Ainda assim, em um estudo de caso de 1997 relatado por Wells e colaboradores, quatro gatos de vida livre se envolveram-se inesperadamente em sessões de terapia [51].
Embora os comportamentos sociais em si não tenham sido analisados especificamente (por exemplo, utilizando medidas de duração ou frequência), houve relatos de interações sociais entre os FRCs e os pacientes. Comportamentos sociais de natureza afiliativa iniciados por um ou mais FRCs incluíam aproximar-se e cumprimentar as pessoas, bem como iniciar contato físico com elas (por exemplo, contato tátil ou sentar-se no colo do cliente). Quanto ao comportamento dos pacientes em relação aos gatos, muitos vocalizavam para os animais e os chamavam para perto de si. Alguns pacientes pareciam criar um vínculo com os gatos, dedicando-lhes atenção especial; frequentemente, solicitavam a presença dos animais durante as consultas e demonstravam interesse em conhecer seus nomes e histórias.
Wells e colegas relatam que os FRCs têm o potencial de atuar como “co-terapeutas” capazes de auxiliar pacientes com traumas físicos ou emocionais, e que a presença desses animais permite aos pacientes dar um passo importante rumo à recuperação [51]. Nesse contexto, os FRCs proporcionaram aos pacientes uma sensação de segurança e valorização (por exemplo, quando um gato optava por entrar pela janela ou demonstrar comportamento de afiliação), permitiram que clientes com traumas físicos praticassem a interação tátil com um parceiro social não ameaçador, possibilitaram que pessoas com dificuldades de apego estabelecessem e mantivessem um vínculo afetivo saudável com um parceiro social, ajudaram os pacientes a desenvolver empatia e enriqueceram as discussões entre paciente e terapeuta. De modo geral, “temas terapêuticos” começaram a surgir durante as sessões com esses gatos. Em muitos aspectos, os gatos serviram como um símbolo de resiliência que refletia a própria experiência dos pacientes. Não foi qualquer grupo de gatos, mas especificamente os FRCs, que trouxe benefícios aos pacientes.
4.2.3. Interações não predatórias
Foram examinadas interações mais gerais entre gatos de colônias de vida livre (FRCs) e a fauna silvestre. Na Ilha Jekyll, 31 desses gatos tiveram uma câmera “KittyCam” colocada em seus pescoços para registrar possíveis interações com animais silvestres. Os pesquisadores compararam as interações dos gatos durante os períodos de alimentação (duas horas antes e duas horas depois do fornecimento de alimento suplementar) com as interações ocorridas fora desse intervalo de quatro horas. Os encontros entre gatos e animais silvestres só eram contabilizados se o gato demonstrasse um comportamento indicativo de percepção da presença do outro animal (por exemplo, mudar a posição da cabeça para olhar na direção do outro animal) e se a interação envolvesse um gato e um animal de porte semelhante ou maior que o dele.
Um total de 142 interações entre gatos e animais silvestres foi registrado [52]. A duração dessas interações variou de alguns segundos a mais de 30 minutos. Dessas interações, 49% ocorreram com guaxinins, 37% com urubus-de-cabeça-preta, 13% com cervos-de-cauda-branca e 1% com gambás-da-virgínia. As interações com todas as espécies animais ocorreram, em média, às 09h39 e estavam associadas ao horário de alimentação. A grande maioria dessas interações ocorreu em um intervalo de até duas horas após a alimentação. Embora muitas interações não envolvessem contato físico, em alguns momentos observaram-se gatos bufando e desferindo golpes com as patas em guaxinins. Os gatos também foram encontrados muito próximos aos animais silvestres (<30 cm), o que pode representar um risco de transmissão de patógenos entre essas populações. No caso dos gatos de vida livre (FRCs) nas docas de Avonmouth, foram registradas três interações entre raposas e esses gatos [26]. Os autores mencionam apenas que tal interação não envolveu contato físico, mas não fornecem mais detalhes; portanto, não está claro em que consistiam essas interações entre raposas e gatos. Embora cães errantes tenham sido observados na área das docas, não foram registradas interações entre cães de vida livre (FRDs) e os gatos de vida livre (FRCs). Em suma, este estudo indica que diversas espécies animais são atraídas para locais com oferta de alimento suplementar e que os gatos de vida livre interagem com algumas dessas espécies silvestres de maneiras não predatórias.
4.3. Direções Futuras
O conjunto de trabalhos apresentado nesta revisão fornece uma excelente base para pesquisas futuras na área do comportamento social de gatos de vida livre (free-roaming cats – FRCs). A maior parte da literatura identificada concentrou-se em interações intraespecíficas. Dois comportamentos observados em FRCs, mas que não receberam muita atenção, são o rolar social e a brincadeira social (Figura 1). Pesquisas futuras devem investigar se os FRCs exibem sinais de brincadeira (semelhantes à postura de convite para brincar em cães) e quais fatores influenciam a ocorrência do rolar social. Além disso, apenas dois artigos sobre a interação entre FRCs e humanos foram publicados até o momento. Apesar de os FRCs estarem presentes em toda parte nos espaços ocupados por humanos e de as pessoas se envolverem em diversos níveis de cuidado com esses animais (por exemplo, fornecimento de alimento suplementar e abrigo, programas de captura-esterilização-devolução/CED, assistência médica, etc.), ainda há escassez de estudos nessa área. Questões fundamentais para trabalhos futuros incluem: o comportamento humano influencia o comportamento dos FRCs (ou seja, a presença, a vocalização ou o toque humano afetam as interações sociais entre os gatos)? Os FRCs criam vínculos com humanos?
Além disso, não foram identificadas pesquisas que examinassem o comportamento agressivo entre gatos de colônia (FRCs) e humanos. Embora comportamentos agressivos não tenham sido medidos diretamente no estudo de caso envolvendo FRCs em um consultório de terapia, não houve relatos de interações agressivas que resultassem em danos aos clientes [51]. Os clientes foram alertados de que gatos podem ser imprevisíveis, o que pode ter influenciado o comportamento deles até certo ponto. Adicionalmente, constatou-se que o nível de interação e cuidado por parte dos humanos influencia a agressividade entre os próprios gatos (Tabela 2). Em suma, é provável que o comportamento humano afete, de diversas maneiras, o comportamento social dos FRCs em relação a pessoas e a outros gatos. Estudos futuros deveriam investigar essas interações sociais complexas. Possíveis questões de pesquisa incluem: a presença de alimento também influencia a agressividade dos FRCs em relação a pessoas? A socialização com humanos influencia a agressividade entre os gatos?
Há também algumas considerações a serem levadas em conta ao ler esta revisão. Vários estudos relevantes — alguns realizados nos mesmos locais descritos neste artigo — foram identificados durante a busca, mas não foram aqui detalhados por estarem fora do escopo do trabalho. Por exemplo, em um estudo, Yamane e colaboradores analisaram o comportamento alimentar de gatos em Ainoshima, mas não mensuraram diretamente o comportamento social; no entanto, observaram tolerância em relação aos filhotes no contexto da alimentação [53]. Turner e Mertens também observaram gatos que viviam em três fazendas suíças, mas avaliaram a tolerância social por meio da sobreposição de áreas de vida, e não pelo comportamento social direto. Eles constataram que “o padrão geral de organização social observado em outros locais foi confirmado: os machos eram, em geral, mais tolerantes entre si do que as fêmeas (com base na sobreposição de áreas), especialmente ao considerar animais que viviam em fazendas diferentes” [2]. Por fim, como esta revisão concentrou-se apenas no comportamento social, alguns aspectos dos estudos incluídos não foram abordados. Por exemplo, Page et al. também avaliaram outros comportamentos individuais dos gatos, como o uso da área de vida e a marcação por odor [26]. Futuras revisões poderão recorrer a um conjunto mais amplo de estudos para analisar se fatores como a densidade populacional (alta versus baixa) e o comportamento alimentar ou de uso da área de vida de cada indivíduo influenciam a dinâmica social entre os gatos. Além disso, apenas estudos publicados em inglês foram incluídos nesta revisão; trabalhos futuros deveriam ampliar a busca para outros idiomas. Visto que grande parte dessas pesquisas foi realizada em países onde o inglês não é a língua principal (como Japão e Itália), é possível que existam outros trabalhos publicados que não foram contemplados nesta revisão.
Não foram identificadas pesquisas na área de cognição social de gatos que medissem diretamente uma interação entre parceiros sociais. Conforme delineado no escopo desta revisão, foram incluídos apenas estudos que mediram ou observaram pelo menos um comportamento social específico ou uma interação entre uma díade ou um grupo de indivíduos. No entanto, existem estudos comportamentais abordando outros aspectos relacionados à cognição social que foram captados na busca inicial, como a percepção olfativa de odores de coespecíficos (por exemplo, [54,55]). Um desses estudos explorou a capacidade dos gatos de distinguir parceiros sociais apenas pelo odor. Natoli constatou que os gatos investigavam por mais tempo a urina deixada por um macho não familiar do que a urina de um indivíduo familiar. Isso indica que os gatos de vida livre (FRCs) distinguiam odores familiares de não familiares [54], resultados semelhantes aos observados em gatos domiciliados [56]. Dada a variabilidade da sociabilidade dos gatos em relação aos humanos — com alguns indivíduos sendo altamente sociais [57] —, o fato de os FRCs demonstrarem comportamento social com pessoas, a prevalência de FRCs em espaços humanos e o sucesso de pesquisadores que atualmente estudam habilidades sociocognitivas em gatos de vida livre [58,59], a pesquisa sobre a cognição social na interação entre FRCs e humanos parece ser uma área importante para estudos futuros. Questões fundamentais incluem: os FRCs alteram seu comportamento social em resposta ao estado emocional ou ao estado de atenção dos humanos? Os FRCs respondem a gestos humanos (por exemplo, olhar e apontar)? Essas habilidades cognitivas variam de acordo com o histórico de socialização do FRC?
5. Conclusões: Solitários ou sociais?
Uma revisão da literatura sobre o comportamento social de gatos que vivem em colônias de vida livre (FRC) destaca várias descobertas importantes. A primeira é que diversos fatores influenciam o comportamento social desses gatos (Tabelas 2 e 3). No caso de interações com outros gatos da mesma espécie, esses fatores estão relacionados a características dos próprios animais (por exemplo, sexo, idade, estado reprodutivo e porte físico), à relação com o outro indivíduo (por exemplo, parentesco, familiaridade ou pertencimento ao mesmo grupo) ou a fatores ambientais (por exemplo, o nível de cuidados recebidos). Quanto às interações com humanos, constatou-se que fatores do ambiente — incluindo o sexo da pessoa e as condições climáticas — exercem influência sobre o comportamento social entre esses gatos e os seres humanos.
Além disso, grupos de gatos de vida livre (FRCs) apresentam grande variabilidade em seu comportamento social. A dinâmica social intraespecífica desses grupos varia conforme o conjunto de gatos analisado. Alguns grupos exibem fortes laços sociais, com afiliações preferenciais entre seus membros (p. ex., [44]), enquanto outros apresentam associações mais frouxas e pouca ou nenhuma interação social [60]. Mesmo grupos de gatos de vida livre que habitam ambientes semelhantes podem diferir significativamente em termos de comportamento social, como observado em estudos realizados com gatos de áreas portuárias. Dards relatou que os gatos de vida livre de Portsmouth viviam socialmente em grupos [24], ao passo que Page et al. constataram que os gatos do porto de Avonmouth apresentavam um estilo de vida predominantemente solitário [26]. Em alguns casos, um conjunto de gatos pode não se enquadrar na definição de colônia social, especialmente quando se trata de grupos que exibem comportamento predominantemente solitário ou mantêm apenas afiliações frouxas (ver Tabela 1). No entanto, a revisão da literatura evidencia que os grupos de gatos frequentemente apresentam associações não aleatórias e relações sociais no âmbito da colônia.
Em gatos que formam grupos sociais, observa-se frequentemente a ocorrência de comportamentos de afiliação. A familiaridade entre os gatos parece ser um fator importante que influencia a manifestação desses comportamentos. A familiaridade entre indivíduos da mesma espécie também pode ser um fator relevante na formação de “parceiros preferenciais” [24,44], e o grau de parentesco pode igualmente desempenhar um papel nesse processo [44]. Também foram registrados comportamentos cooperativos entre gatos de vida livre, especificamente entre membros de um mesmo grupo social. Tais comportamentos incluem o uso compartilhado de abrigos e o cuidado cooperativo, situação em que fêmeas adultas amamentavam e cuidavam de filhotes indistintamente [30,44]. Além disso, brigas físicas que envolvem contato direto entre os gatos são pouco frequentes; em vez disso, observam-se interações agonísticas que envolvem comportamentos de submissão e posturas corporais (por exemplo, desviar a cabeça para evitar contato visual). É possível que a ausência de relações sociais dentro de um grupo aumente a agressividade entre gatos que compartilham o mesmo local [43].
Ao tratar dos gatos do Portsmouth Dockyard, Dards afirmou: “É evidente que o gato doméstico é capaz de uma estrutura social muito mais complexa do que se pensava anteriormente, e que isso também se estende aos machos adultos, que, à primeira vista, parecem ser independentes dela” ([24], p. 151). Da mesma forma, Macdonald et al., ao abordarem os gatos de Church Farm, afirmam que “existem muitas relações não aleatórias entre esses gatos” ([44], p. 45) e que essas descobertas “indicam que a colônia possuía uma estrutura social e não era apenas um agrupamento, e que as interações sociais dos gatos eram estruturadas com base em relações sociais distintas” (p. 59).
Embora vários dos estudos analisados tenham constatado que grupos de gatos formam colônias com relações sociais distintas, nem todos os estudos sobre o comportamento social dos gatos obtiveram os mesmos resultados. Ao descreverem os gatos do estaleiro de Avonmouth, Page et al. observaram: “Os gatos eram predominantemente solitários, em vez de viverem em grupo, apresentando pouco contato ou interação social” ([26], p. 263). Além disso, gatos em um local de descarte de resíduos foram frequentemente observados comendo lixo simultaneamente, mas permaneciam majoritariamente separados, sendo as interações pouco frequentes [60]. Interações entre gatos foram registradas em apenas 35 de 330 observações, o que corresponde a apenas 10,6% do total. Esses exemplos evidenciam a flexibilidade social do gato doméstico e sua capacidade de formar tanto laços fortes quanto associações mais frouxas.
Esta revisão analisou os trabalhos realizados até o momento sobre o comportamento social de gatos de vida livre (FRCs), com o objetivo de tirar conclusões a respeito da natureza social desses animais. Spotte afirmou: “É duvidoso que o gato doméstico seja, de fato, um animal social — e muito menos socialmente complexo” [5]. Embora seja verdade que “uma maior tolerância a coespecíficos não é necessariamente sinal de uma interação social voluntária” (p. 50) e que “o agrupamento em si não é evidência de sociabilidade” (p. 70), a revisão da literatura atual indica que, em diversas situações, os comportamentos sociais dos FRCs vão além da mera tolerância. Embora os agrupamentos de alguns gatos possam ser descritos com maior precisão como uma “tolerância mútua” com vínculos frouxos [42], essa descrição não se aplica adequadamente a muitos dos comportamentos observados entre gatos nessas colônias ou durante interações com humanos. Os FRCs optam por iniciar interações sociais com humanos e coespecíficos, podendo apresentar um comportamento altamente social. Como mencionado, um vínculo afiliativo é uma relação social duradoura caracterizada por altas taxas de comportamento afiliativo [17]. Os gatos não exibem comportamento social de forma aleatória. Em muitos casos, os gatos de uma colônia parecem manter vínculos afiliativos com determinados indivíduos em detrimento de outros; a direção dessas interações tende a ser estável, e gatos de grupos externos provavelmente sofrerão maior agressividade por parte dos membros do grupo. Essas descobertas indicam que as relações entre FRCs são, de fato, complexas e merecem estudos mais aprofundados.
Os gatos domésticos não constituem um caso único nessa demonstração de comportamento social flexível. Também foi observada variabilidade no comportamento social de cães domésticos [6]. Cães domésticos vivem em diversos ambientes sociais, tanto em residências humanas quanto ao ar livre, na condição de cães de vida livre (FRDs). Eles também apresentam um período sensível para a socialização (aproximadamente entre 3 e 12 ou 3 e 16 semanas de idade) e, assim como os gatos, seu comportamento social depende das experiências vivenciadas durante esse período. Cães não socializados nessa fase seriam considerados “ferais”, enquanto aqueles socializados nesse intervalo seriam considerados “mansos” (ver Tabela 1 e [6] para uma discussão sobre FRDs). Alguns cientistas também descreveram os cães domésticos como “socialmente facultativos” [6, 61]. Sabe-se também que a vida social dos FRDs varia de acordo com fatores ambientais, como a disponibilidade de recursos. Essa variação pode decorrer de uma “plasticidade social” que permite aos cães ocupar uma gama variada de ambientes sociais. Udell e Brubaker definem um generalista social como uma “espécie capaz de prosperar em muitos cenários diferentes, graças à sua habilidade de se adaptar a uma ampla variedade de ambientes sociais e de adotar estratégias sociais distintas” (p. 327).
Como espécie, os gatos domésticos também podem ser considerados “generalistas sociais” que demonstram flexibilidade em seu comportamento social. Pesquisas com gatos domésticos indicam que alguns animais sofrem estresse ao viver sem outros gatos da mesma espécie, enquanto outros se estressam com a presença de outros gatos [62]. Gatos domésticos também apresentam variações em sua sociabilidade em relação às pessoas, e muitos demonstram capacidade de serem altamente sociáveis [57]. Observou-se também que gatos domésticos formam vínculos fortes com humanos [63, 64, 65], sendo essas relações relativamente estáveis ao longo do tempo [63]. Por fim, muitos gatos buscam interação social com pessoas [57] e preferem a interação social com humanos a outras recompensas, como comida, brinquedos ou objetos com odores específicos [66]. Em suma, as conclusões desta revisão sugerem que o comportamento social dos gatos domésticos é altamente individual, socialmente flexível e dependente de diversos fatores genéticos e vivenciais. A vida social desses gatos existe e é complexa. O conjunto atual de literatura fornece uma excelente base para trabalhos futuros. A continuidade das pesquisas nessa área é importante e ajudará a esclarecer ainda mais a vida social dos gatos domésticos.
Agradecimentos
Gostaria de agradecer aos bibliotecários da Biblioteca Dorothy Webb Quimby, no Unity College (Maine), pela ajuda na localização de algumas das publicações mais difíceis de encontrar. Gostaria também de agradecer aos cuidadores da colônia e aos moradores da ilha que me permitiram observar e fotografar o comportamento dos FRCs. Agradeço aos meus colegas no Japão pelo apoio durante minha estadia no país.
Materiais Suplementares
As seguintes informações de suporte podem ser baixadas em: https://www.mdpi.com/article/10.3390/ani12010126/s1, Tabela S1: Estudos sobre comportamento social intraespecífico de FRC. São apresentados o local e o(s) comportamento(s) social(is) medido(s) ou observado(s) em cada estudo. As categorias comportamentais são: Afiliativo (AFF), Agonístico (AGON), Reprodutivo (REPRO), Cuidado (CARE), Cooperativo (COOP) e Outros (O) [67,68]; Tabela S2: Estudos sobre comportamento social interespecífico de FRC. São apresentados o local, as espécies e o(s) comportamento(s) social(is) medido(s) ou observado(s) em cada estudo. As categorias comportamentais são: Afiliativo (AFF) e Outros (O).
Funding
This research did not receive a specific grant from funding agencies in the public, commercial, or not-for-profit sectors. However, the cat behavior photography was supported by the National Science Foundation Graduate Research Fellowship Program under Grant 370 No. (1314109- DGE) and a 2017–2018 Graduate Research Opportunities Worldwide Grant from NSF and the Japan Society for the Promotion of Science. Any opinions, findings, and conclusions or recommendations expressed in this material are those of the author(s) and do not necessarily reflect the views of the National Science Foundation.
Institutional Review Board Statement
Not applicable.
Informed Consent Statement
Not applicable.
Conflicts of Interest
The authors declare no conflict of interest.
Footnotes
Publisher’s Note: MDPI stays neutral with regard to jurisdictional claims in published maps and institutional affiliations.
References
- 1.Izawa M., Doi T. Flexibility of the Social System of the Feral Cat, Felis catus. Physiol. Ecol. Jpn. 1993;29:237–247. [Google Scholar]
- 2.Turner D.C., Mertens C. Home Range Size, Overlap and Exploitation in Domestic Farm Cats (Felis catus) Behaviour. 1986;99:22–45. [Google Scholar]
- 3.Fagen R. Population Structure and Social Behavior in the Domestic Cat (Felis catus) Carniv. Genet. Newsl. 1978;3:276–281. [Google Scholar]
- 4.Liberg O., Sandell M., Pontier D., Natoli E. Density, Space Organisation and Reproductive Tactics in the Domestic Cat and Other Felids. In: Turner D.C., Bateson P.P.G., editors. The Domestic Cat: The Biology of Its Behaviour. Cambridge University Press; Cambridge, MA, USA: 2000. pp. 119–147. [Google Scholar]
- 5.Spotte S. Free-Ranging Cats Behavior, Ecology, Management. Wiley; Hoboken, NJ, USA: 2014. 3. Interaction. [Google Scholar]
- 6.Udell M.A.R., Brubaker L. Are Dogs Social Generalists? Canine Social Cognition, Attachment, and the Dog-Human Bond. Curr. Dir. Psychol. Sci. 2016;25:327–333. doi: 10.1177/0963721416662647. [DOI] [Google Scholar]
- 7.Montague M.J., Li G., Gandolfi B., Khan R., Aken B.L., Searle S.M.J., Minx P., Hillier L.W., Koboldt D.C., Davis B.W., et al. Comparative Analysis of the Domestic Cat Genome Reveals Genetic Signatures Underlying Feline Biology and Domestication. Proc. Natl. Acad. Sci. USA. 2014;111:17230–17235. doi: 10.1073/pnas.1410083111. [DOI] [PMC free article] [PubMed] [Google Scholar]
- 8.Slater M.R. The Welfare of Cats. Springer; Berlin/Heidelberg, Germany: 2007. The Welfare of Feral Cats; pp. 141–175. [Google Scholar]
- 9.Crowell-Davis S.L., Curtis T.M., Knowles R.J. Social Organization in the Cat: A Modern Understanding. J. Feline Med. Surg. 2004;6:19–28. doi: 10.1016/j.jfms.2003.09.013. [DOI] [PMC free article] [PubMed] [Google Scholar]
- 10.Collard R.R. Fear of Strangers and Play Behavior in Kittens with Varied Social Experience. Child. Dev. 1967;38:877–891. doi: 10.2307/1127265. [DOI] [PubMed] [Google Scholar]
- 11.Karsh E.B., Turner D.C. The Human-Cat Relationship. In: Turner D.C., Bateson P.P.G., editors. The Domestic Cat: The Biology of Its Behaviour. Cambridge University Press; Cambridge, MA, USA: 1988. pp. 157–177. [Google Scholar]
- 12.Gosling L., Stavisky J., Dean R. What Is a Feral Cat?: Variation in Definitions May Be Associated with Different Management Strategies. J. Feline Med. Surg. 2013;15:759–764. doi: 10.1177/1098612X13481034. [DOI] [PMC free article] [PubMed] [Google Scholar]
- 13.Bradshaw J.W.S., Horsfield G.F., Allen J.A., Robinson I.H. Feral Cats: Their Role in the Population Dynamics of Felis catus. Appl. Anim. Behav. Sci. 1999;65:273–283. doi: 10.1016/S0168-1591(99)00086-6. [DOI] [Google Scholar]
- 14.Ballard J.W.O., Wilson L.A.B. The Australian Dingo: Untamed or Feral? Front. Zool. 2019;16:2. doi: 10.1186/s12983-019-0300-6. [DOI] [PMC free article] [PubMed] [Google Scholar]
- 15.Gering E., Incorvaia D., Henriksen R., Conner J., Getty T., Wright D. Getting Back to Nature: Feralization in Animals and Plants. Trends Ecol. Evol. 2019;34:1137–1151. doi: 10.1016/j.tree.2019.07.018. [DOI] [PMC free article] [PubMed] [Google Scholar]
- 16.Mitsui K., Sato S., Kakuma Y. Effects of the Community Cats Program on Population Control, Migration and Welfare Status of Free-Roaming Cats in Tokyo, Japan. Animals. 2020;10:461. doi: 10.3390/ani10030461. [DOI] [PMC free article] [PubMed] [Google Scholar]
- 17.Jasso del Toro C., Nekaris K.A.-I. Affiliative Behaviors. In: Vonk J., Shackelford T., editors. Encyclopedia of Animal Cognition and Behavior. Springer International Publishing; Cham, NY, USA: 2019. pp. 1–6. [Google Scholar]
- 18.Young C. Agonistic Behavior. In: Vonk J., Shackelford T., editors. Encyclopedia of Animal Cognition and Behavior. Springer International Publishing; Cham, NY, USA: 2019. pp. 1–6. [Google Scholar]
- 19.Freeman N.C.G., Rosenblatt J.S. The Interrelationship between Thermal and Olfactory Stimulation in the Development of Home Orientation in Newborn Kittens. Dev. Psychobiol. 1978;11:437–457. doi: 10.1002/dev.420110508. [DOI] [PubMed] [Google Scholar]
- 20.Freeman N., Rosenblatt J. Specificity of Litter Odors in the Control of Home Orientation Among Kittens. Dev. Psychobiol. 1978;11:459–468. doi: 10.1002/dev.420110509. [DOI] [PubMed] [Google Scholar]
- 21.Stanton L.A., Sullivan M.S., Fazio J.M. A Standardized Ethogram for the Felidae: A Tool for Behavioral Researchers. Appl. Anim. Behav. Sci. 2015;173:3–16. doi: 10.1016/j.applanim.2015.04.001. [DOI] [Google Scholar]
- 22.Shettleworth S.J. Animal Cognition and Animal Behaviour. Anim. Behav. 2001;61:277–286. doi: 10.1006/anbe.2000.1606. [DOI] [Google Scholar]
- 23.Hunt C., Borgida E., Lavine H. Social Cognition. In: Ramachandran V.S., editor. Encyclopedia of Human Behavior. 2nd ed. Academic Press; San Diego, CA, USA: 2012. pp. 456–462. [Google Scholar]
- 24.Dards J.L. The Behaviour of Dockyard Cats: Interactions of Adult Males. Appl. Anim. Ethol. 1983;10:133–153. doi: 10.1016/0304-3762(83)90117-7. [DOI] [Google Scholar]
- 25.Dards J.L. Home Ranges of Feral Cats in Portsmouth Dockyard. Carniv. Genet. Newsl. 1978;3:242–253. [Google Scholar]
- 26.Page R.J.C., Rossa J., Bennett D.H. A Study of the Home Ranges, Movements and Behaviour of the Feral Cat Population at Avonmouth Docks. Wildl. Res. 1992;19:263–277. doi: 10.1071/WR9920263. [DOI] [Google Scholar]
- 27.Yamane A., Doi T., Ono Y. Mating Behaviors, Courtship Rank and Mating Success of Male Feral Cat (Felis catus) J. Ethol. 1996;14:35–44. doi: 10.1007/BF02350090. [DOI] [Google Scholar]
- 28.Yamane A. Male Reproductive Tactics and Reproductive Success of the Group-Living Feral Cat (Felis catus) Behav. Processes. 1998;43:239–249. doi: 10.1016/S0376-6357(98)00018-7. [DOI] [PubMed] [Google Scholar]
- 29.Yamane A. Male Homosexual Mounting in the Group-Living Feral Cat (Felis catus) Ethol. Ecol. Evol. 1999;11:399–406. doi: 10.1080/08927014.1999.9522822. [DOI] [Google Scholar]
- 30.Izawa M., Ono Y. Mother-Offspring Relationship in the Feral Cat Population. J. Mammal. Soc. Jpn. 1986;11:27–34. doi: 10.11238/jmammsocjapan1952.11.27. [DOI] [Google Scholar]
- 31.Ishida Y., Yahara T., Kasuya E., Yamane A. Female Control of Paternity during Copulation: Inbreeding Avoidance in Feral Cats. Behaviour. 2001;138:235–250. doi: 10.1163/15685390151074401. [DOI] [Google Scholar]
- 32.Neville P.F., Remfry J. Effect of Neutering on Two Groups of Feral Cats. Vet. Rec. 1984;114:447–450. doi: 10.1136/vr.114.18.447. [DOI] [PubMed] [Google Scholar]
- 33.Finkler H., Gunther I., Terkel J. Behavioral Differences between Urban Feeding Groups of Neutered and Sexually Intact Free-Roaming Cats Following a Trap-Neuter-Return Procedure. J. Am. Vet. Med. Assoc. 2011;238:1141–1149. doi: 10.2460/javma.238.9.1141. [DOI] [PubMed] [Google Scholar]
- 34.Finkler H., Terkel J. Cortisol Levels and Aggression in Neutered and Intact Free-Roaming Female Cats Living in Urban Social Groups. Physiol. Behav. 2010;99:343–347. doi: 10.1016/j.physbeh.2009.11.014. [DOI] [PubMed] [Google Scholar]
- 35.Finkler H., Hatna E., Terkel J. The Impact of Anthropogenic Factors on the Behavior, Reproduction, Management and Welfare of Urban, Free-Roaming Cat Populations. Anthrozoos. 2011;24:31–49. doi: 10.2752/175303711X12923300467320. [DOI] [Google Scholar]
- 36.Finkler H., Terkel J. The Relationship between Individual Behavioural Styles, Dominance Rank and Cortisol Levels of Cats Living in Urban Social Groups. Appl. Anim. Behav. Sci. 2015;173:22–28. doi: 10.1016/j.applanim.2015.04.016. [DOI] [Google Scholar]
- 37.Natoli E., De Vito E. The Domestic Cat: The Biology of Its Behaviour. Cambridge University Press; Cambridge, MA, USA: 1988. The Mating System of Feral Cats Living in a Group; pp. 99–108. [Google Scholar]
- 38.Bonanni R., Cafazzo S., Fantini C., Pontier D., Natoli E. Feeding-Order in an Urban Feral Domestic Cat Colony: Relationship to Dominance Rank, Sex and Age. Anim. Behav. 2007;74:1369–1379. doi: 10.1016/j.anbehav.2007.02.029. [DOI] [Google Scholar]
- 39.Cafazzo S., Natoli E. The Social Function of Tail up in the Domestic Cat (Felis silvestris catus) Behav. Processes. 2009;80:60–66. doi: 10.1016/j.beproc.2008.09.008. [DOI] [PubMed] [Google Scholar]
- 40.Cafazzo S., Bonanni R., Natoli E. Neutering Effects on Social Behaviour of Urban Unowned Free-Roaming Domestic Cats. Animals. 2019;9:1105. doi: 10.3390/ani9121105. [DOI] [PMC free article] [PubMed] [Google Scholar]
- 41.Natoli E., Say L., Cafazzo S., Bonanni R., Schmid M., Pontier D. Bold Attitude Makes Male Urban Feral Domestic Cats More Vulnerable to Feline Immunodeficiency Virus. Neurosci. Biobehav. Rev. 2005;29:151–157. doi: 10.1016/j.neubiorev.2004.06.011. [DOI] [PubMed] [Google Scholar]
- 42.Natoli E., Schmid M., Say L., Pontier D. Male Reproductive Success in a Social Group of Urban Feral Cats (Felis catus L.) Ethology. 2007;113:283–289. doi: 10.1111/j.1439-0310.2006.01320.x. [DOI] [Google Scholar]
- 43.Laundré J. The Daytime Behaviour of Domestic Cats in a Free-Roaming Population. Anim. Behav. 1977;25:990–998. doi: 10.1016/0003-3472(77)90050-1. [DOI] [Google Scholar]
- 44.Macdonald D.W., Apps P.J., Carr G.M., Kerby G. Social Dynamics, Nursing Coalitions and Infanticide among Farm Cats, Felis catus. Adv. Ethol. 1987;28:1–66. [Google Scholar]
- 45.Pontier D., Natoli E. Infanticide in Rural Male Cats (Felis catus L.) as a Reproductive Mating Tactic. Aggress. Behav. 1999;25:445–449. doi: 10.1002/(SICI)1098-2337(1999)25:6<445::AID-AB5>3.0.CO;2-K. [DOI] [Google Scholar]
- 46.Izawa M., Doi T., Ono Y. Grouping Patterns of Feral Cats (Felis catus) Living on a Small Island in Japan. Jpn. J. Ecol. 1982;32:373–382. doi: 10.18960/seitai.32.3_373. [DOI] [Google Scholar]
- 47.Natoli E., De Vito E. Agonistic Behaviour, Dominance Rank and Copulatory Success in a Large Multi-Male Feral Cat, Felis catus L., Colony in Central Rome. Anim. Behav. 1991;42:227–241. doi: 10.1016/S0003-3472(05)80554-8. [DOI] [Google Scholar]
- 48.Courchamp F., Say L., Pontier D. Transmission of Feline Immunodeficiency Virus in a Population of Cats (Felis catus) Wildl. Res. 2000;27:603–611. doi: 10.1071/WR99049. [DOI] [Google Scholar]
- 49.Natoli E., De Vito E., Pontier D. Mate Choice in the Domestic Cat (Felis silvestris catus L.) Aggress. Behav. 2000;26:455–465. doi: 10.1002/1098-2337(200011)26:6<455::AID-AB4>3.0.CO;2-3. [DOI] [Google Scholar]
- 50.Li Y., Wan Y., Zhang Y., Gong Z., Li Z. Understanding How Free-Ranging Cats Interact with Humans: A Case Study in China with Management Implications. Biol. Conserv. 2020;249:108690. doi: 10.1016/j.biocon.2020.108690. [DOI] [Google Scholar]
- 51.Wells E., Rosen L., Waishaw S. Use of Feral Cats in Psychotherapy. Anthrozoos. 1997;10:125–130. doi: 10.2752/089279397787001085. [DOI] [Google Scholar]
- 52.Hernandez S.M., Loyd K.A.T., Newton A.N., Gallagher M., Carswell B.L., Abernathy K.J. Activity Patterns and Interspecific Interactions of Free-Roaming, Domestic Cats in Managed Trap-Neuter-Return Colonies. Appl. Anim. Behav. Sci. 2018;202:63–68. doi: 10.1016/j.applanim.2018.01.014. [DOI] [Google Scholar]
- 53.Yamane A., Emoto J., Ota N. Factors Affecting Feeding Order and Social Tolerance to Kittens in the Group-Living Feral Cat (Felis catus) Appl. Anim. Behav. Sci. 1997;52:119–127. doi: 10.1016/S0168-1591(96)01101-X. [DOI] [Google Scholar]
- 54.Natoli E. Behavioural Responses of Urban Feral Cats to Different Types of Urine Marks. Behaviour. 1985;94:234–243. doi: 10.1163/156853985X00208. [DOI] [Google Scholar]
- 55.Natoli E. Reactions of Female Domestic Cats (Felis catus L.) to Sprayed Urine of a Strange Male. Olfactory Behaviour. Ethol. Ecol. Evol. 1989;1:247–254. doi: 10.1080/08927014.1989.9525514. [DOI] [Google Scholar]
- 56.Nakabayashi M., Yamaoka R., Nakashima Y. Do Faecal Odours Enable Domestic Cats (Felis catus) to Distinguish Familiarity of the Donors? J. Ethol. 2012;30:325–329. doi: 10.1007/s10164-011-0321-x. [DOI] [Google Scholar]
- 57.Vitale K.R., Udell M.A.R. The Quality of Being Sociable: The Influence of Human Attentional State, Population, and Human Familiarity on Domestic Cat Sociability. Behav. Processes. 2019;158:11–17. doi: 10.1016/j.beproc.2018.10.026. [DOI] [PubMed] [Google Scholar]
- 58.Brubaker L., Dasgupta S., Bhattacharjee D., Bhadra A., Udell M.A.R. Differences in Problem-Solving between Canid Populations: Do Domestication and Lifetime Experience Affect Persistence? Anim. Cogn. 2017;20:717–723. doi: 10.1007/s10071-017-1093-7. [DOI] [PubMed] [Google Scholar]
- 59.Bhattacharjee D., Dasgupta S., Biswas A., Deheria J., Gupta S., Nikhil Dev N., Udell M., Bhadra A. Practice Makes Perfect: Familiarity of Task Determines Success in Solvable Tasks for Free-Ranging Dogs (Canis lupus familiaris) Anim. Cogn. 2017;20:771–776. doi: 10.1007/s10071-017-1097-3. [DOI] [PubMed] [Google Scholar]
- 60.Denny E., Yakovlevich P., Eldridge M.D.B., Dickman C. Social and Genetic Analysis of a Population of Free-Living Cats (Felis catus L.) Exploiting a Resource-Rich Habitat. Wildl. Res. 2002;29:405–413. doi: 10.1071/WR02092. [DOI] [Google Scholar]
- 61.Paul M., Majumder S.S., Nandi A.K., Bhadra A. Selfish Mothers Indeed! Resource-Dependent Conflict over Extended Parental Care in Free-Ranging Dogs. R. Soc. Open Sci. 2015;2:150580. doi: 10.1098/rsos.150580. [DOI] [PMC free article] [PubMed] [Google Scholar]
- 62.Ramos D., Reche-Junior A., Fragoso P.L., Palme R., Yanasse N.K., Gouvêa V.R., Beck A., Mills D.S. Are Cats (Felis catus) from Multi-Cat Households More Stressed? Evidence from Assessment of Fecal Glucocorticoid Metabolite Analysis. Physiol. Behav. 2013;122:72–75. doi: 10.1016/j.physbeh.2013.08.028. [DOI] [PubMed] [Google Scholar]
- 63.Vitale K.R., Behnke A.C., Udell M.A. Attachment Bonds between Domestic Cats and Humans. Curr. Biol. 2019;29:R864–R865. doi: 10.1016/j.cub.2019.08.036. [DOI] [PubMed] [Google Scholar]
- 64.Behnke A.C., Vitale K.R., Udell M.A.R. The Effect of Owner Presence and Scent on Stress Resilience in Cats. Appl. Anim. Behav. Sci. 2021;243:105444. doi: 10.1016/j.applanim.2021.105444. [DOI] [Google Scholar]
- 65.Edwards C., Heiblum M., Tejeda A., Galindo F. Experimental Evaluation of Attachment Behaviors in Owned Cats. J. Vet. Behav. Clin. Appl. Res. 2007;2:119–125. doi: 10.1016/j.jveb.2007.06.004. [DOI] [Google Scholar]
- 66.Vitale Shreve K.R., Mehrkam L.R., Udell M.A.R. Social Interaction, Food, Scent or Toys? A Formal Assessment of Domestic Pet and Shelter Cat (Felis silvestris catus) Preferences. Behav. Processes. 2017;141:322–328. doi: 10.1016/j.beproc.2017.03.016. [DOI] [PubMed] [Google Scholar]
- 67.Say L., Pontier D., Natoli E. Influence of Oestrus Synchronization on Male Reproductive Success in the Domestic Cat (Felis catus L.) Proc. Royal Soc. B. 2001;268:1049–1053. doi: 10.1098/rspb.2001.1583. [DOI] [PMC free article] [PubMed] [Google Scholar]
- 68.Say L., Pontier D. Spacing Pattern in a Social Group of Stray Cats: Effects on Male Reproductive Success. Anim. Behav. 2004;68:175–180. doi: 10.1016/j.anbehav.2003.11.008. [DOI] [Google Scholar]